

 下载:

-
KIT蛋白,又称CD117或干细胞因子受体,由原癌基因c-kit编码,是一种经典的酪氨酸激酶,属于III型酪氨酸激酶(RTK)家族[1],其蛋白结构包含一个胞外配体结合区、一个跨膜结构域以及一个胞内具有酪氨酸激酶活性的区域[2],当干细胞因子(SCF)作为配体与KIT结合时,会诱导受体发生二聚化,进而激活其酪氨酸激酶活性,导致自身磷酸化[1-2]。这一过程启动了下游一系列信号级联反应并在人体多种生理和病理过程中发挥着核心调控作用。研究表明KIT能够通过调节神经、免疫和造血功能在神经系统、免疫系统和心血管系统中起着重要作用。例如在神经系统中,KIT受体对于维持皮肤感觉神经末梢的密度和功能具有不可替代的作用。研究表明,KIT信号通过SRC家族激酶(SFK)通路发挥作用,维持成熟的轴突分支和末梢,当KIT信号下调时,会导致已建立的皮肤轴突末梢迅速回缩和密度降低[3]。KIT受体同样表达于皮肤肥大细胞表面,其在特应性皮炎(AD)等炎症性疾病中发挥重要功能。肥大细胞被激活后释放的IL-4、IL-13和IL-31等介质,能够促进Th2型免疫反应并加剧瘙痒[4]。而在造血系统中,KIT信号对于正常血细胞生成至关重要。研究发现,造血干细胞(HSCs)上的KIT受体参与了干细胞池的调控,通过一种称为“trogocytosis”的细胞间直接转移机制,HSCs能够从骨髓驻留的巨噬细胞表面获取KIT,从而快速建立功能调节性的分子机制[5]。KIT信号不仅维持干性,其活性的精细调控还决定了造血细胞的分化方向。一方面,KIT+造血干细胞在骨髓间充质基质细胞(MSCs)的影响下,通过激活JAK3/STAT3、ERK和PI3K信号通路,能够被诱导分化为粒细胞[6],另一方面,通过将c-Kit+细胞封装在海藻酸盐-明胶水凝胶中,模拟特定的微环境并释放特定细胞因子(如IL-2, IL-3, IL-7, IL-12),可以有效诱导其向NK细胞分化,并增强分化后NK细胞的杀伤能力[7-8]。且文献报道KIT是分泌蛋白METRNL(Meteorin-like)的高亲和力受体;METRNL能够通过与KIT受体胞外域结合,激活KIT受体,诱导其自磷酸化,促进血管生成和心脏修复[9]。与此同时KIT受体在免疫系统也发挥重要作用,研究表明,KIT信号对于肥大细胞在过敏反应中的功能至关重要。在IL-3介导的肥大细胞分化过程中,JNK信号通路的活性直接调控KIT的表面表达水平。当JNK信号被抑制时,分化后的肥大细胞表面KIT水平显著降低,导致其在过敏原刺激下的早期介质释放(脱颗粒)减少约80%,同时晚期阶段CCL1、CCL2、CCL3、TNF和IL-6的分泌也受到抑制[10]。KIT受体还参与皮肤黑色素细胞增殖分化的关键生物学过程,KIT与其配体KITL(干细胞因子SCF)的结合激活下游信号通路,包括PI3K和MAPK通路,这些信号级联反应调控黑色素细胞前体的迁移和分化,当KIT功能缺失时,黑色素细胞无法正常发育,导致毛发色素沉着障碍[11]。因此Kit基因功能异常会引发色素缺失、造血功能障碍、免疫紊乱等多种病理表型,是研究色素脱失类疾病、造血缺陷、过敏性疾病的重要靶点。
本研究依托CRISPR/Cas9技术构建稳定遗传的Kit+/-杂合敲除小鼠,通过基因型鉴定、多组织mRNA与蛋白水平检测完成模型分子验证,并系统观察、确认Kit敲除小鼠特征性自发性色素脱失表型,旨在建立一套完整可重复的Kit敲除小鼠构建、繁育与验证技术体系,为后续KIT介导的造血、神经、免疫、皮肤发育及相关分子互作机制研究提供实验动物模型。
-
鼠尾DNA提取试剂盒(CW2094S)购自北京康为世纪生物科技有限公司;5×Evo M-MLV RT Master Mix(AG11706)、2×SYBR Green(AG11718)、RNA提取辅助试剂购自湖南艾科瑞生物工程有限公司;Trizol、蛋白酶磷酸酶抑制剂混合物(通用型,50×)、辣根过氧化物酶标记山羊抗小鼠IgG(H+L)(A0216)、辣根过氧化物酶标记山羊抗兔IgG(H+L)(A0208)购自上海碧云天生物技术有限公司;小鼠Actin抗体(
66009 -1-IG)购自武汉三鹰技术有限公司;c-Kit(D13A2)Rabbit抗体购自Cell Signaling Technology公司。实时荧光定量PCR仪(LightCycler96)购自Roche公司;TP600 PCR仪购自Takara公司;5200S化学发光分析系统购自Tanon公司。
-
阳性杂合子F0代小鼠(Kit+/-)4只,其中雌雄各2只,野生型背景小鼠(C57BL/6J)20只,其中雌雄各10只,以上小鼠均购自江苏集萃药康生物科技股份有限公司。
所有实验小鼠均饲养在独立通气笼盒(IVC)系统中,温度(24±2)℃,相对湿度为40%~60%,饲养期间笼盒内保持清洁,小鼠在笼内自由活动、进食及饮水,动物房内照明系统为自动控制(12 h昼夜交替)。动物实验标准均依照国家《实验动物护理使用卫生指南》,并经过海军军医大学医学研究伦理委员会批准指导。
-
用剪刀酒精消毒后取小鼠鼠尾3~5 mm,剪碎,按照DNA提取试剂盒的说明书方法提取DNA,随后对目的基因进行PCR扩增,各引物序列如表1所示。
表 1 PCR扩增引物
PCR
反应引物
名称引物序列 片段大小 PCR① F1 TGTTCAGTCCTTGGCAGCCTTG WT: 6628 bp
KO: 450 bpR1 GGGATTGTGCTCTGTAAGGTTAGC PCR② F2 GGTTGACCCAGAGAAAGCTGTG WT: 515 bp
KO: 0 bpR2 CACGTAAATAGAACTCGTGAGGCC 注:野生型:PCR①反应产生WT条带,由于条带过大,可能无法获得清晰条带,PCR②反应获得WT条带;杂合子:PCR①反应获得KO条带,PCR②反应获得WT条带;纯合子:PCR①反应获得KO条带,PCR②反应未产生产物。 将PCR扩增得到的DNA产物使用1.2%琼脂糖凝胶电泳,每孔上样6 μl,电泳条件为100 V,30 min。电泳结束后进行拍照分析。
-
将F0代Kit+/-小鼠与C57BL/6J小鼠交配获得F1代Kit+/-小鼠与WT小鼠,同时使用“1.3.1”项中提到的方法对F1代小鼠进行基因鉴定,验证其Kit基因的敲除情况,挑选出其中的Kit+/-小鼠用于保种建系即可获得稳定遗传的Kit+/-小鼠品系。
-
选取8周龄左右,体重20 g以上的F1代Kit+/-小鼠与WT小鼠,麻醉后,打开胸腔暴露心脏,对其进行灌流,灌流结束后迅速剥离肝、肺、肾、脾、脑组织,放入组织冻存管并将组织冻存管放入液氮暂存,待取材结束后将各组织装袋放入-80℃超低温冰箱储存。
-
采用Trizol法提取小鼠肝、肾、肺、脾、脑组织总RNA,每样组织按标准操作充分裂解、RNA提取辅助试剂抽提、异丙醇沉淀及乙醇洗涤,获得纯净总RNA。利用紫外分光光度计测定RNA在260 nm、280 nm处吸光度,计算RNA浓度与OD260/OD280比值,筛选比值在1.8~2.0之间、纯度合格且无明显降解的RNA样本。按照逆转录试剂盒说明书配置反应体系,设置合适反应程序进行反转录,合成第一链cDNA。将所得cDNA产物稀释后作为模板,用于后续实时荧光定量PCR扩增实验。各引物序列见表2。
表 2 实时荧光定量PCR实验中的引物序列
基因名称 正向引物 反向引物 Kit ACGTGTTTGTTAGAG
ATCCTGCCATTGGACACCTGTGG
GTCTGGapdh GTATGACTCCACTCAC
GGCAAAGGTCTCGCTCCTGGAA
GATG -
取适量组织放入2 ml高速离心管,加入细胞裂解液、蛋白酶抑制剂以及磁珠后放入组织研磨仪(60 Hz、60 s/次),分4次研磨。随后离心(
12000 g,15 min),吸取上清液至1.5 ml EP管中。取部分上清液进行蛋白浓度定量测定,剩余上清液加入5×蛋白上样缓冲液97℃加热10 min,获得蛋白样品。配制10%SDS-PAGE凝胶进行电泳,电泳条件为150 V×60 min。采用PVDF膜进行转膜,转膜条件为100 V×60 min。
转模结束后加入快速封闭液封闭30 min,之后1×TBST缓冲溶液洗膜3次,每次10 min,洗膜完成后加入一抗(1∶
10000 稀释),在4℃冰箱孵育过夜。第二天回收一抗,1×TBST缓冲溶液洗膜3次(10 min/次),待洗膜完成后二抗(1∶1000 稀释)室温孵育1 h。孵育完成后回收二抗,洗膜,随后进行显影。 -
实验数据使用GraphPad Prism 9.5进行统计分析。两组间的比较使用双尾Student’s t test检验,P<0.05视为结果存在统计学意义。
-
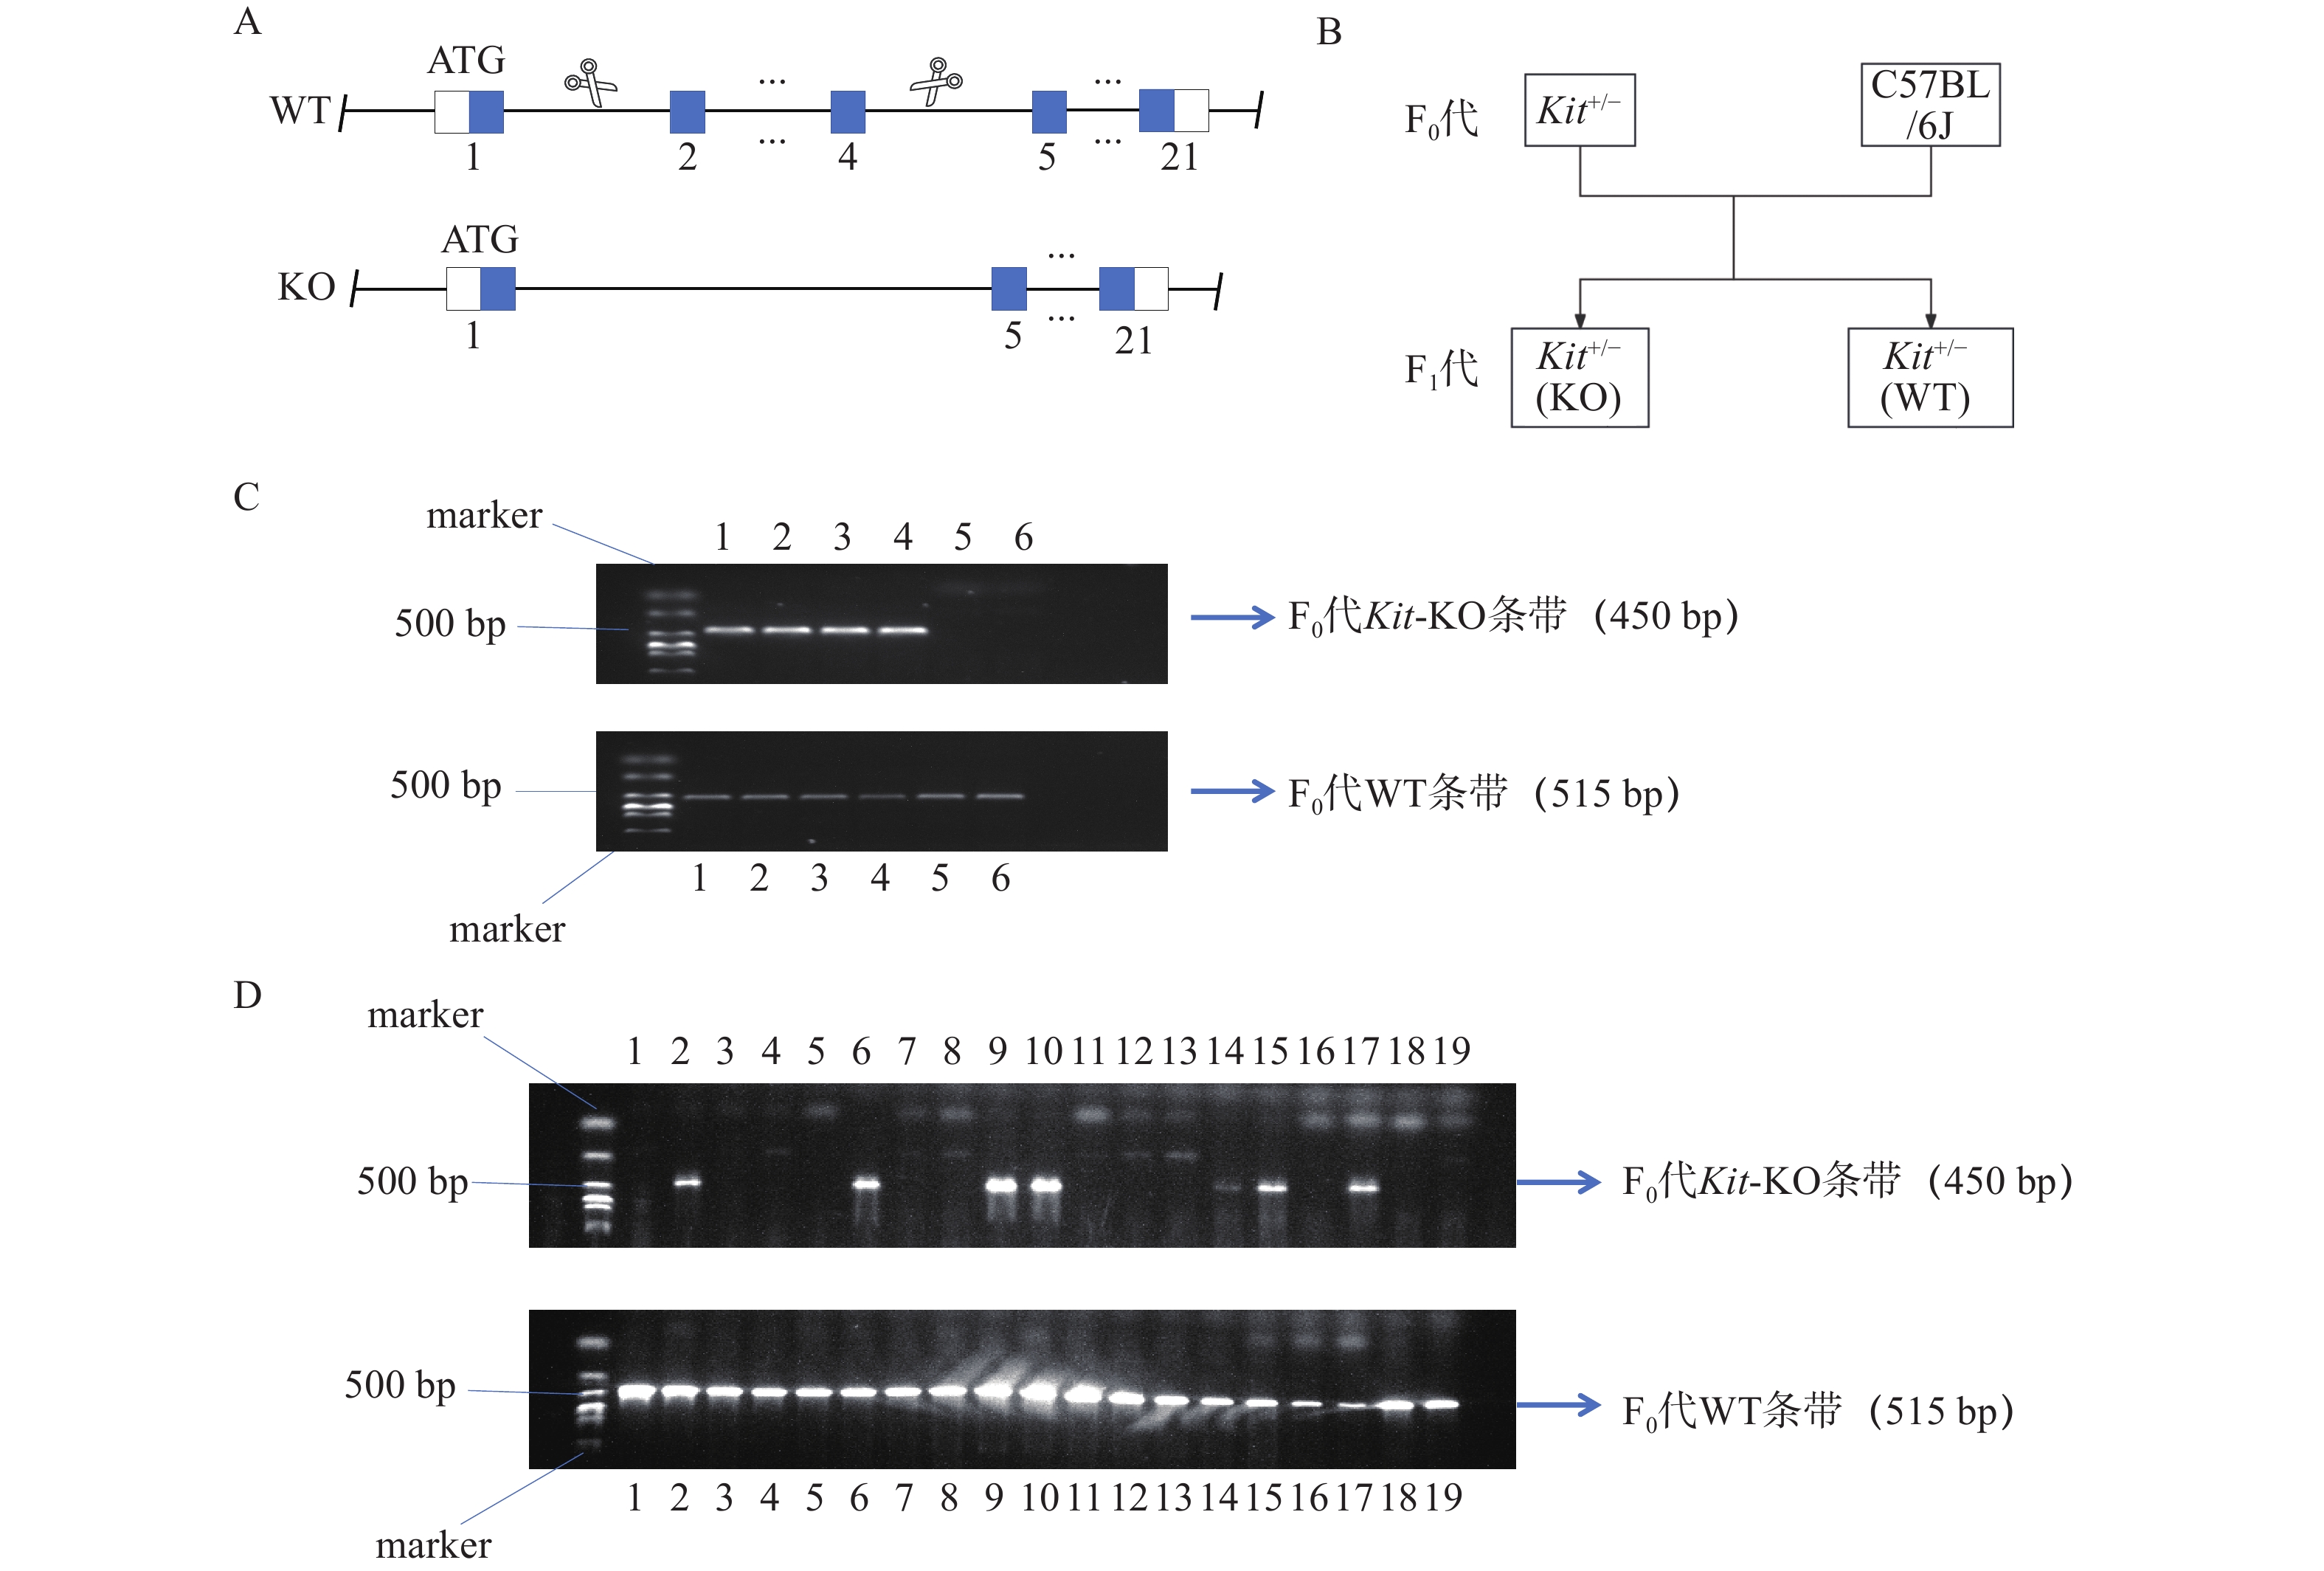
本研究是以C57BL/6J为遗传背景,选取Kit-201转录本(ENSMUST00000005815.7)外显子2–4(692 bp编码区)为敲除区域,将Cas9与sgRNA显微注射至C57BL/6J小鼠的受精卵中,移植受精卵后获得阳性F0代小鼠,并通过PCR和测序验证,具体的构建策略如图1A。将F0代Kit+/-小鼠与C57BL/6J小鼠交配得到F1代目的基因小鼠Kit+/-与对照组小鼠(WT),F1代Kit+/-小鼠可用于保种建系如图1B,F1代杂合子小鼠可以相互交配,后代有25%的概率得到纯合子,而Kit基因的纯合全敲小鼠在胚胎期就会导致造血系统的严重缺陷而引起胚胎致死或围产期致死[12]。为了验证纯合子后代是否引起胚胎致死,在繁育过程中我们将两只F1代杂合子小鼠进行杂交得到的所有后代进行鉴定,结果也未曾出现过纯合子后代。
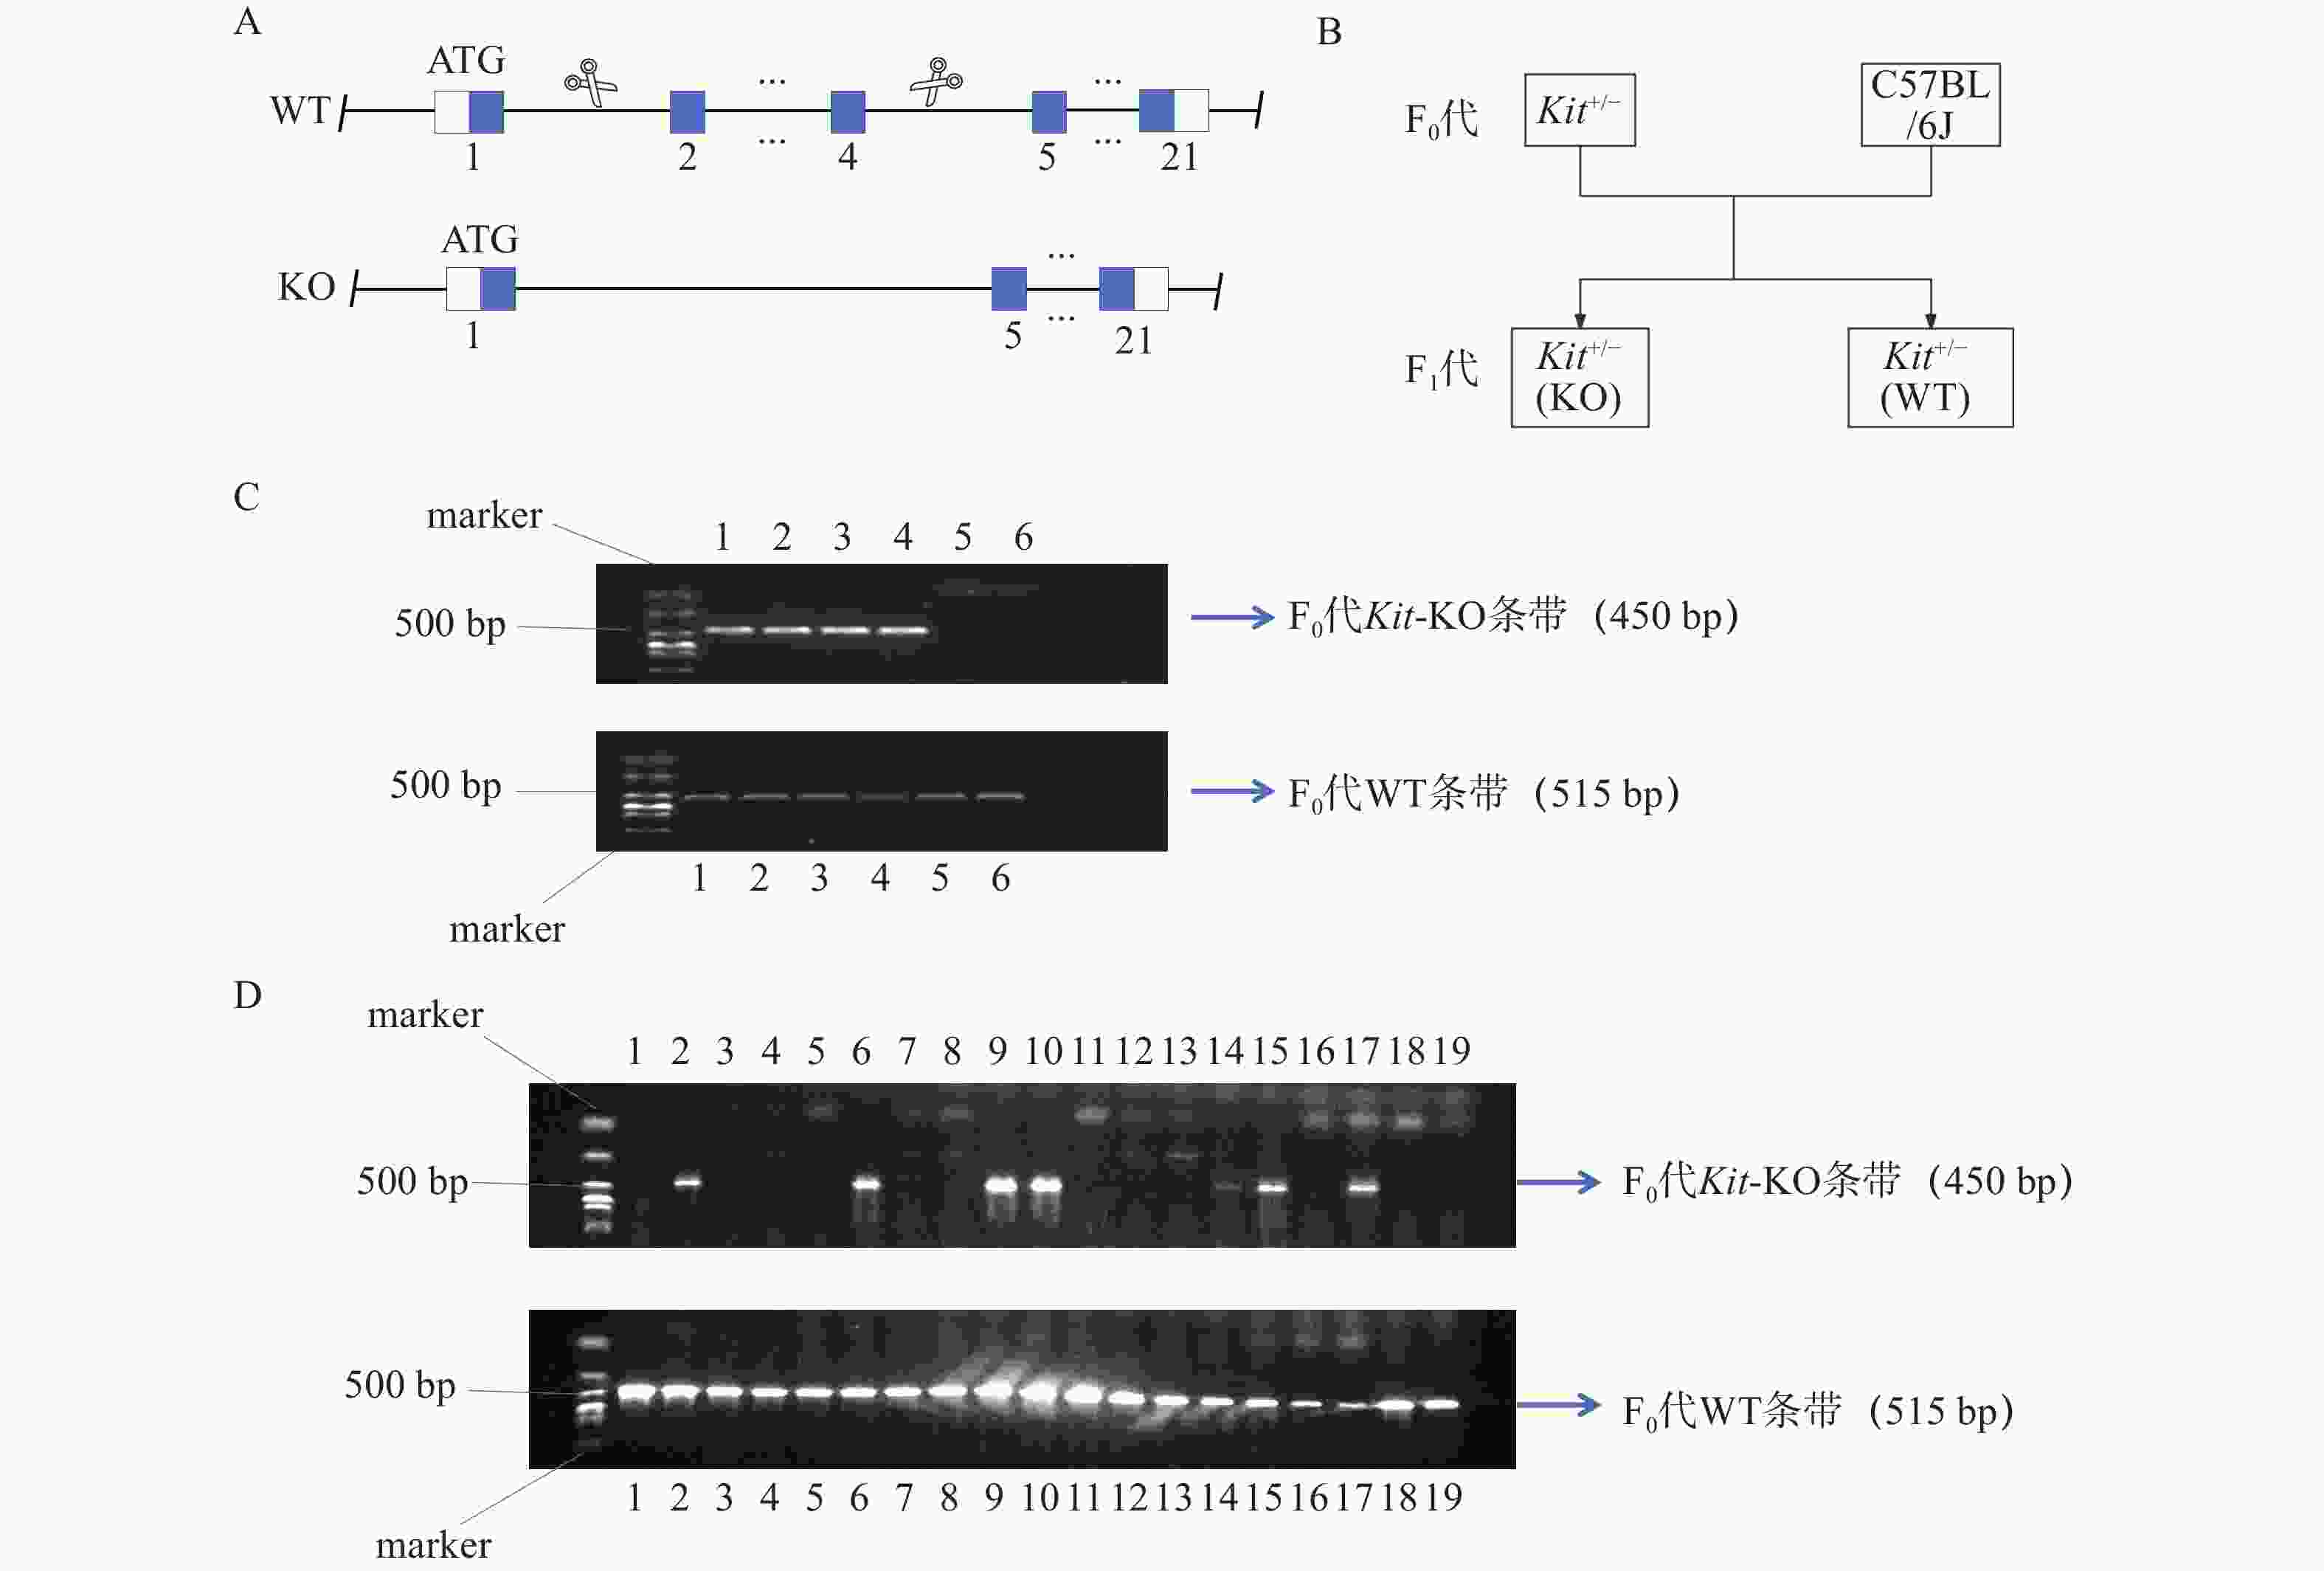
图 1 全身性Kit基因敲除杂合子小鼠(Kit+/-)模型的构建以及基因鉴定
繁育过程中进行基因鉴定时,需确认Kit基因的表达情况,分别使用两组引物(表1)进行鼠尾基因型鉴定。所获得的阳性F0代小鼠的基因型经验证均为杂合子Kit+/-小鼠,电泳结果如图1C所示,其中1-4为F0代Kit+/-小鼠,5和6为C57BL/6J小鼠;对繁育过程中的F1代小鼠的基因型也进行了鉴定,其中2、6、9、10、14、15和17为Kit+/-小鼠,1、3-5、7、8、11-14、16、18和19为WT小鼠,如图1D所示。
-
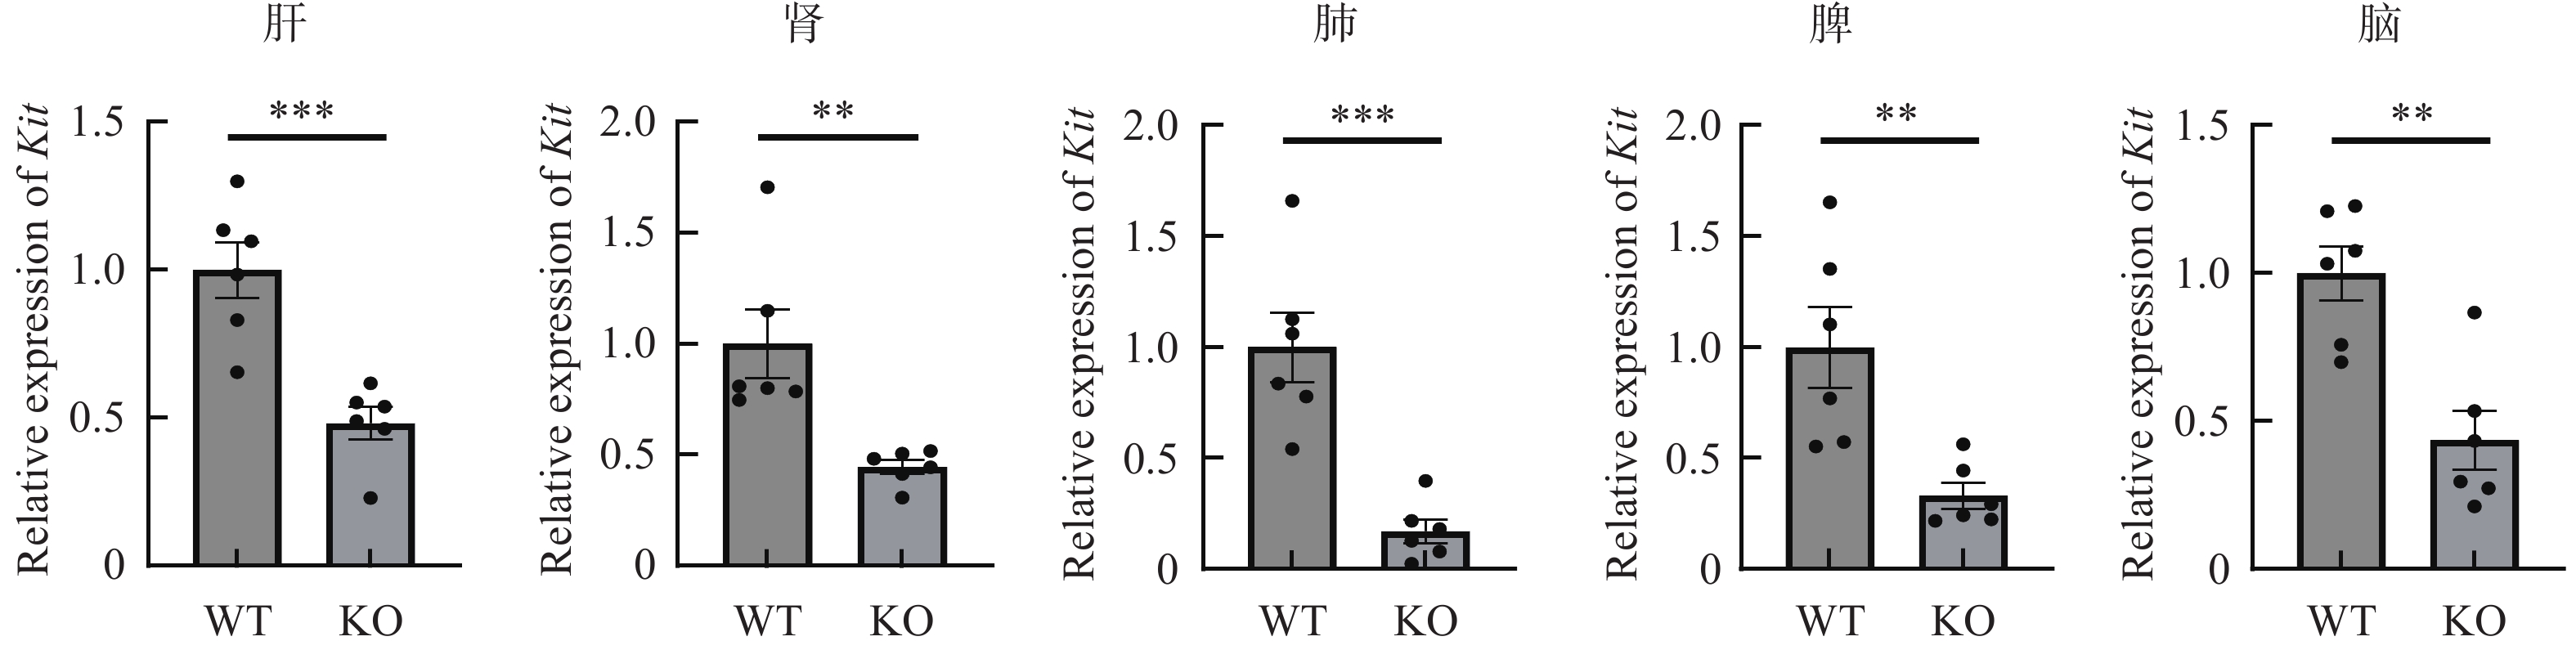
为验证Kit+/-小鼠各组织Kit基因是否敲低,按照6:6的比例分别提取了Kit+/-小鼠与对照组WT小鼠的各组织RNA,并使用实时荧光定量实验检测了其mRNA表达情况。如图2所示,以WT小鼠的mRNA表达量为1,Kit+/-小鼠的肝、肾、肺、脾、脑组织相对于WT小鼠的Kit基因mRNA表达量均有明显的降低(P<0.01),该结果说明Kit+/-小鼠各组织中Kit基因mRNA转录水平被成功敲低。
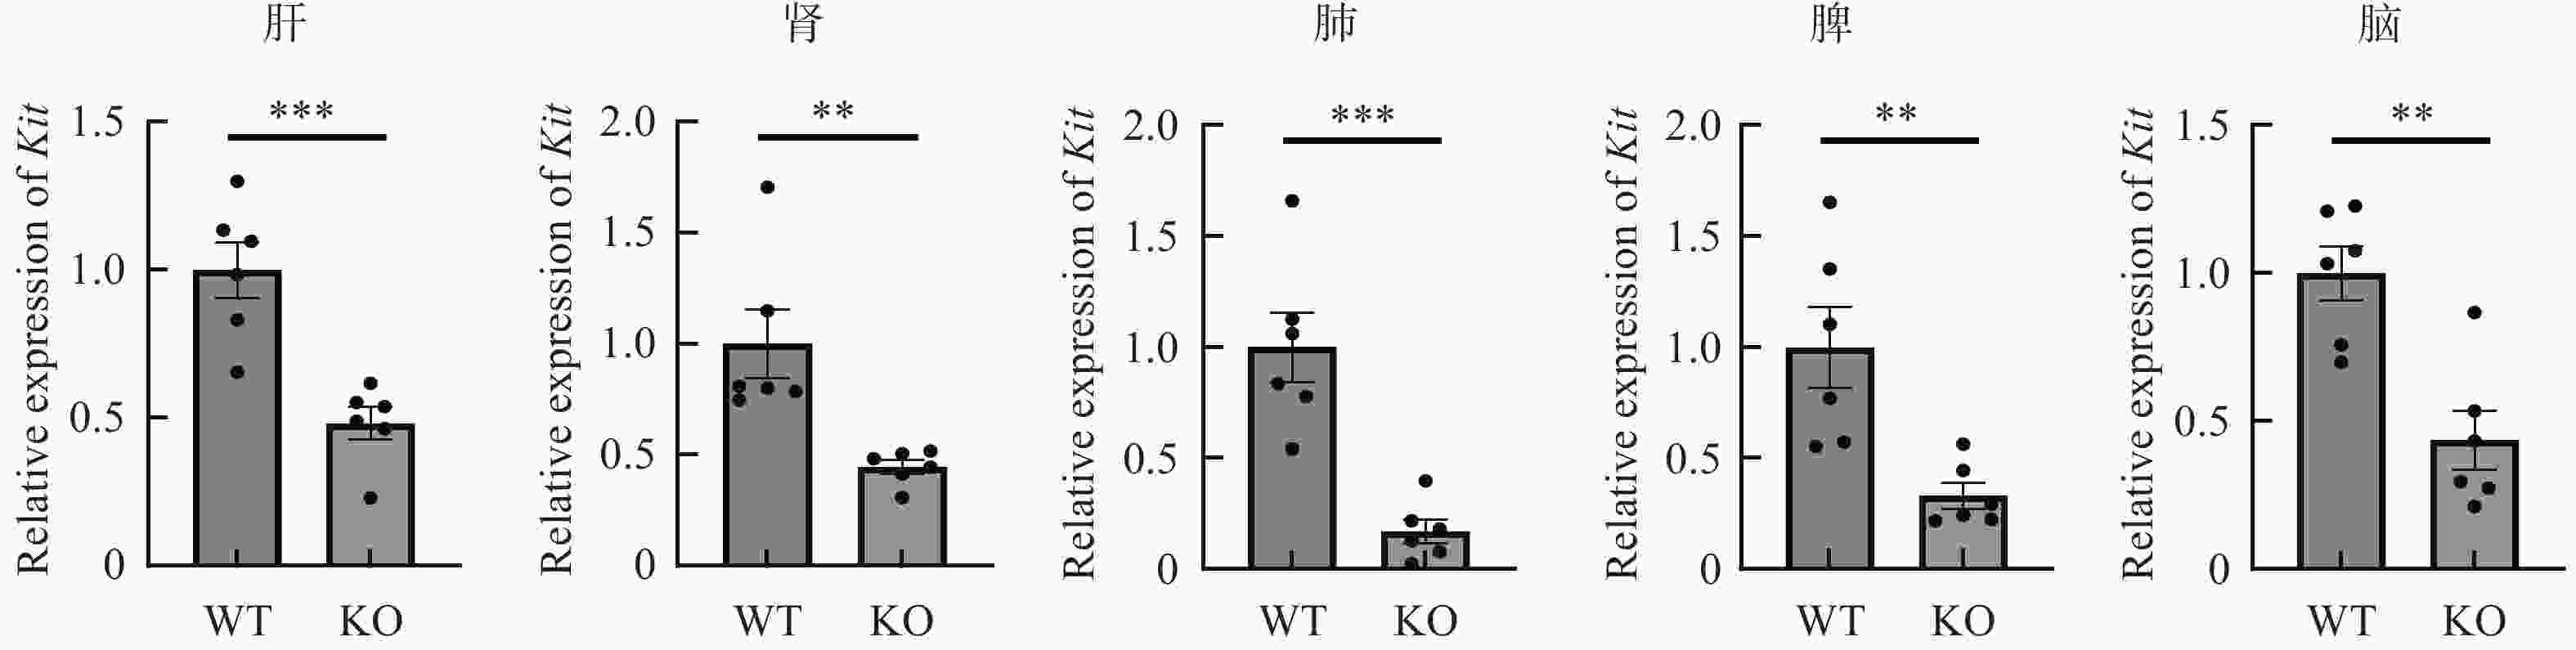
图 2 Kit+/-小鼠各组织中Kit基因mRNA水平相对表达量
-
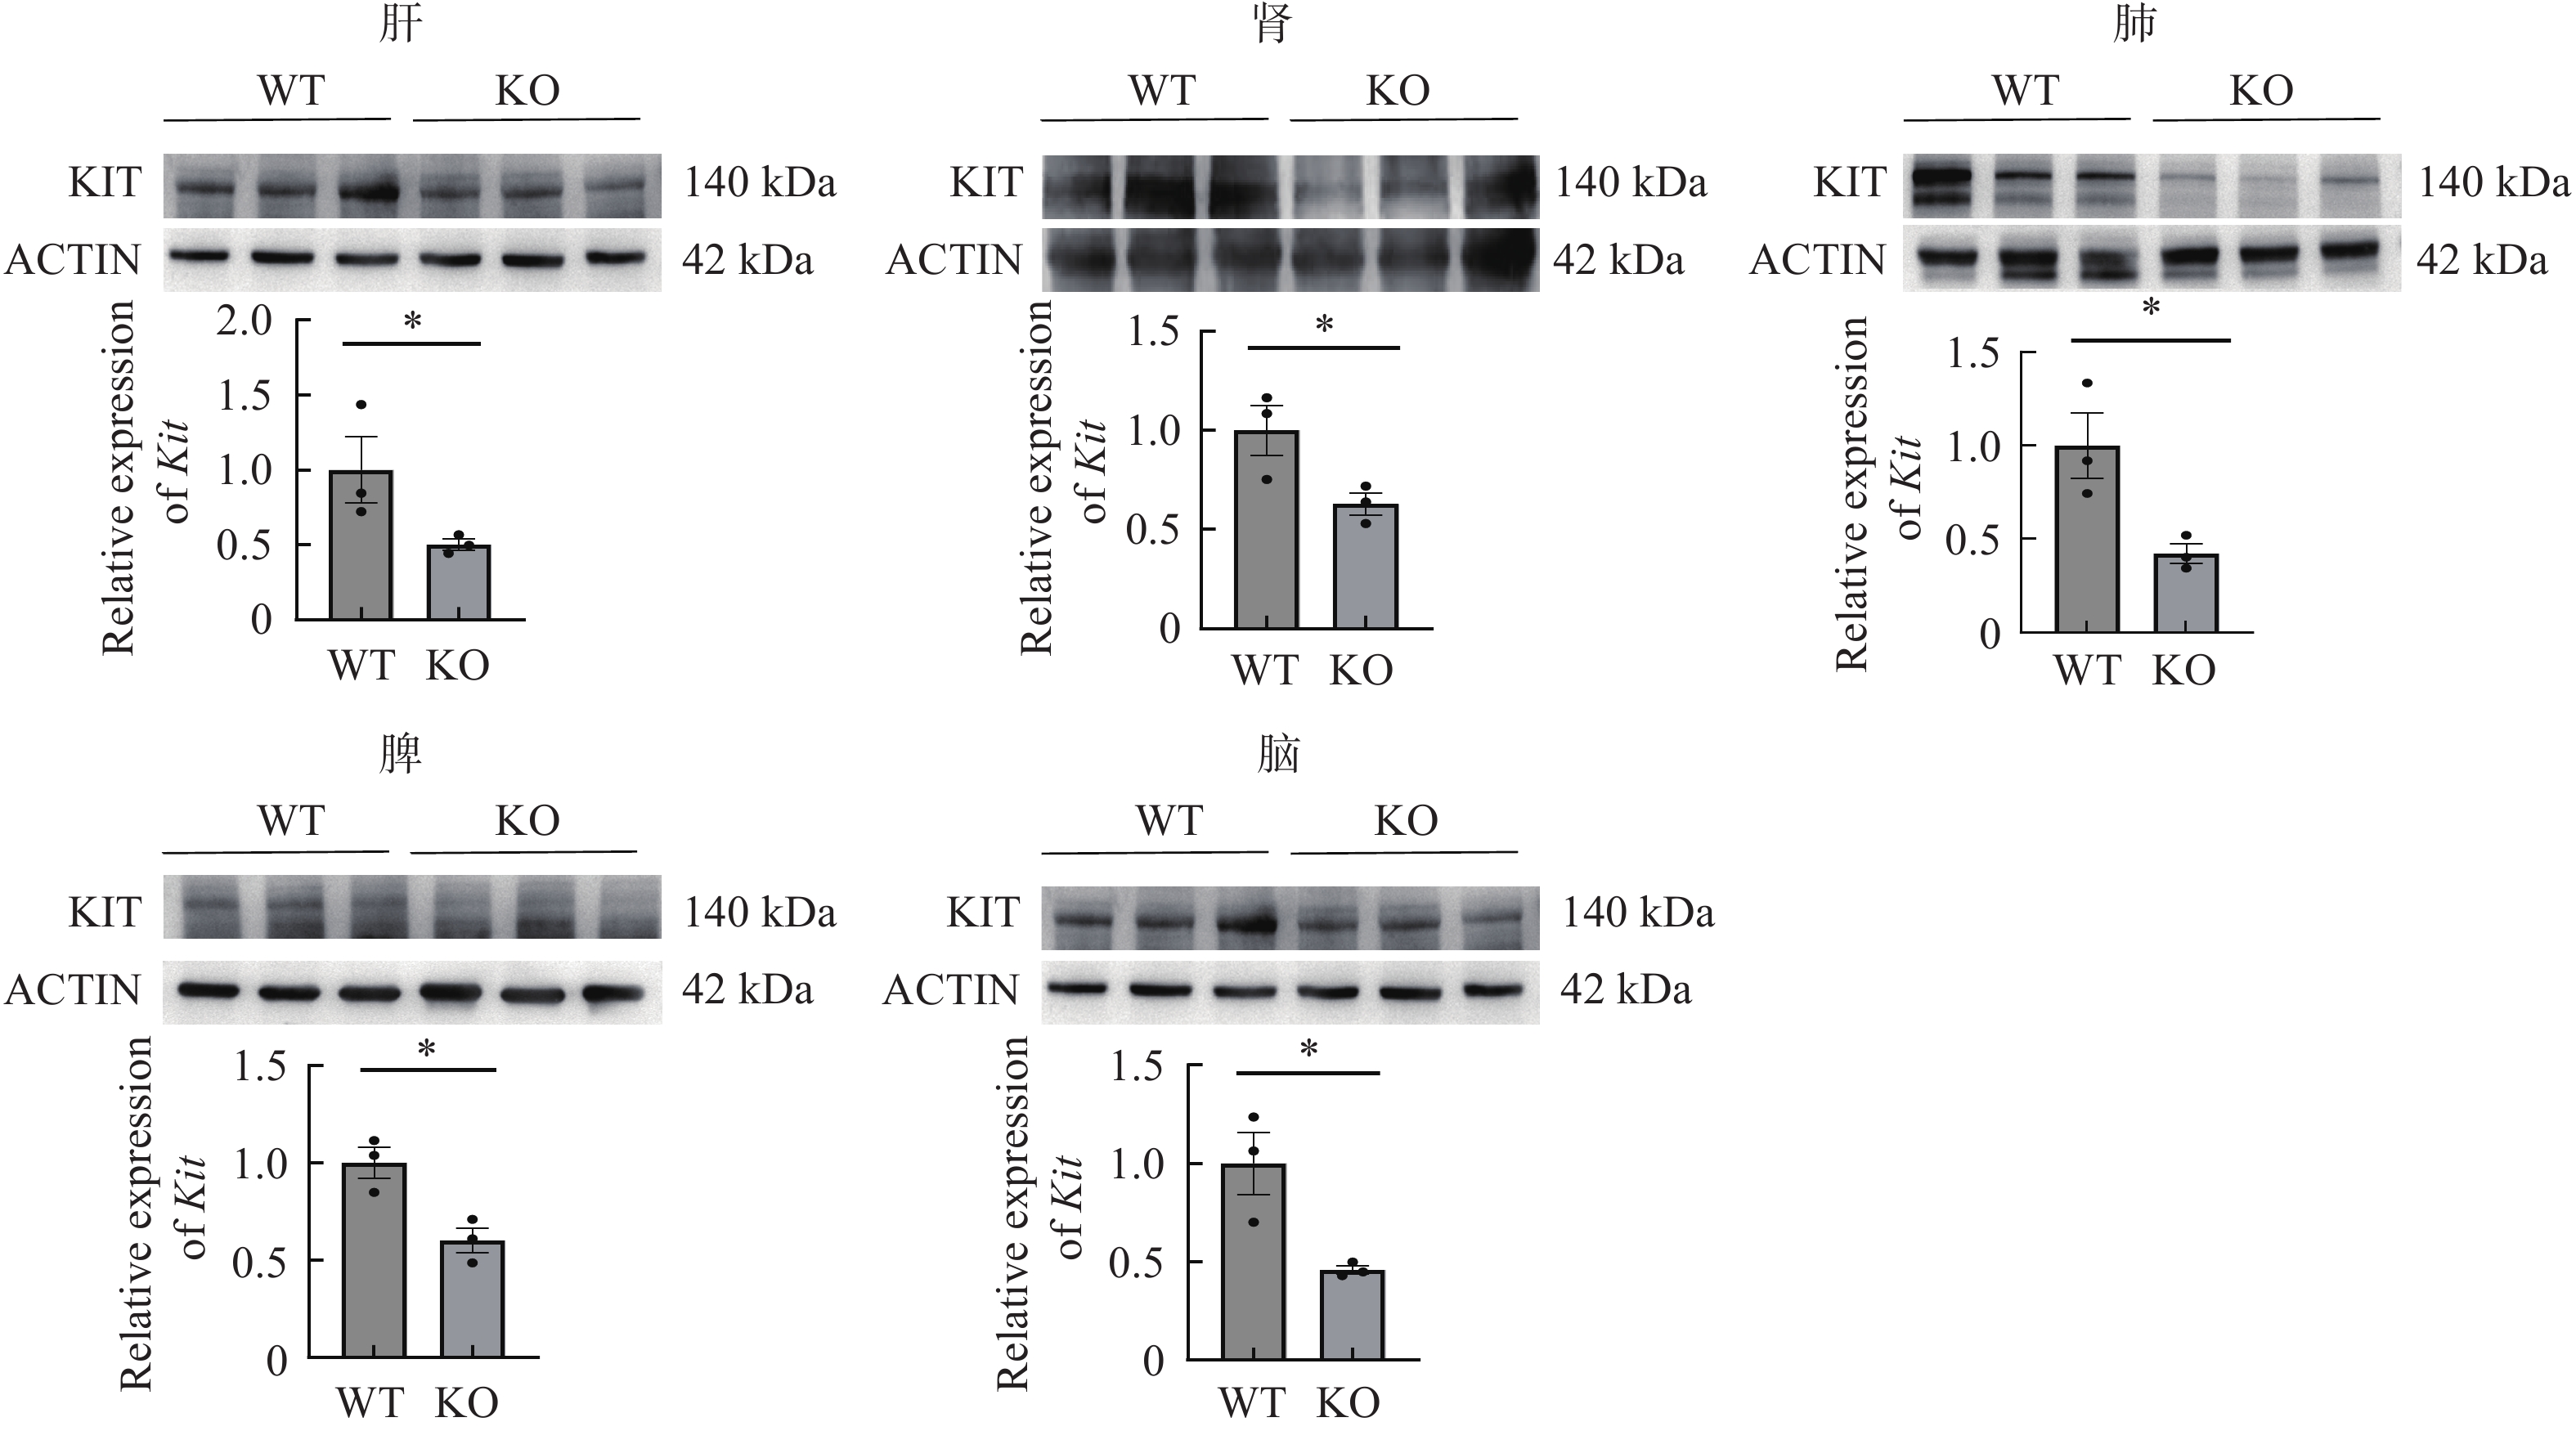
为验证Kit+/-小鼠各组织KIT蛋白表达最终是否成功降低,本研究同样按照3:3的比例提取了Kit+/-小鼠与对照组WT小鼠的各组织蛋白,并使用蛋白免疫印迹实验验证了其蛋白的表达情况。如图3所示,KIT蛋白在KO小鼠各组织中的表达含量均显著低于对照组WT小鼠,该结果提示本研究构建的Kit+/-小鼠体内KIT蛋白被成功敲低。
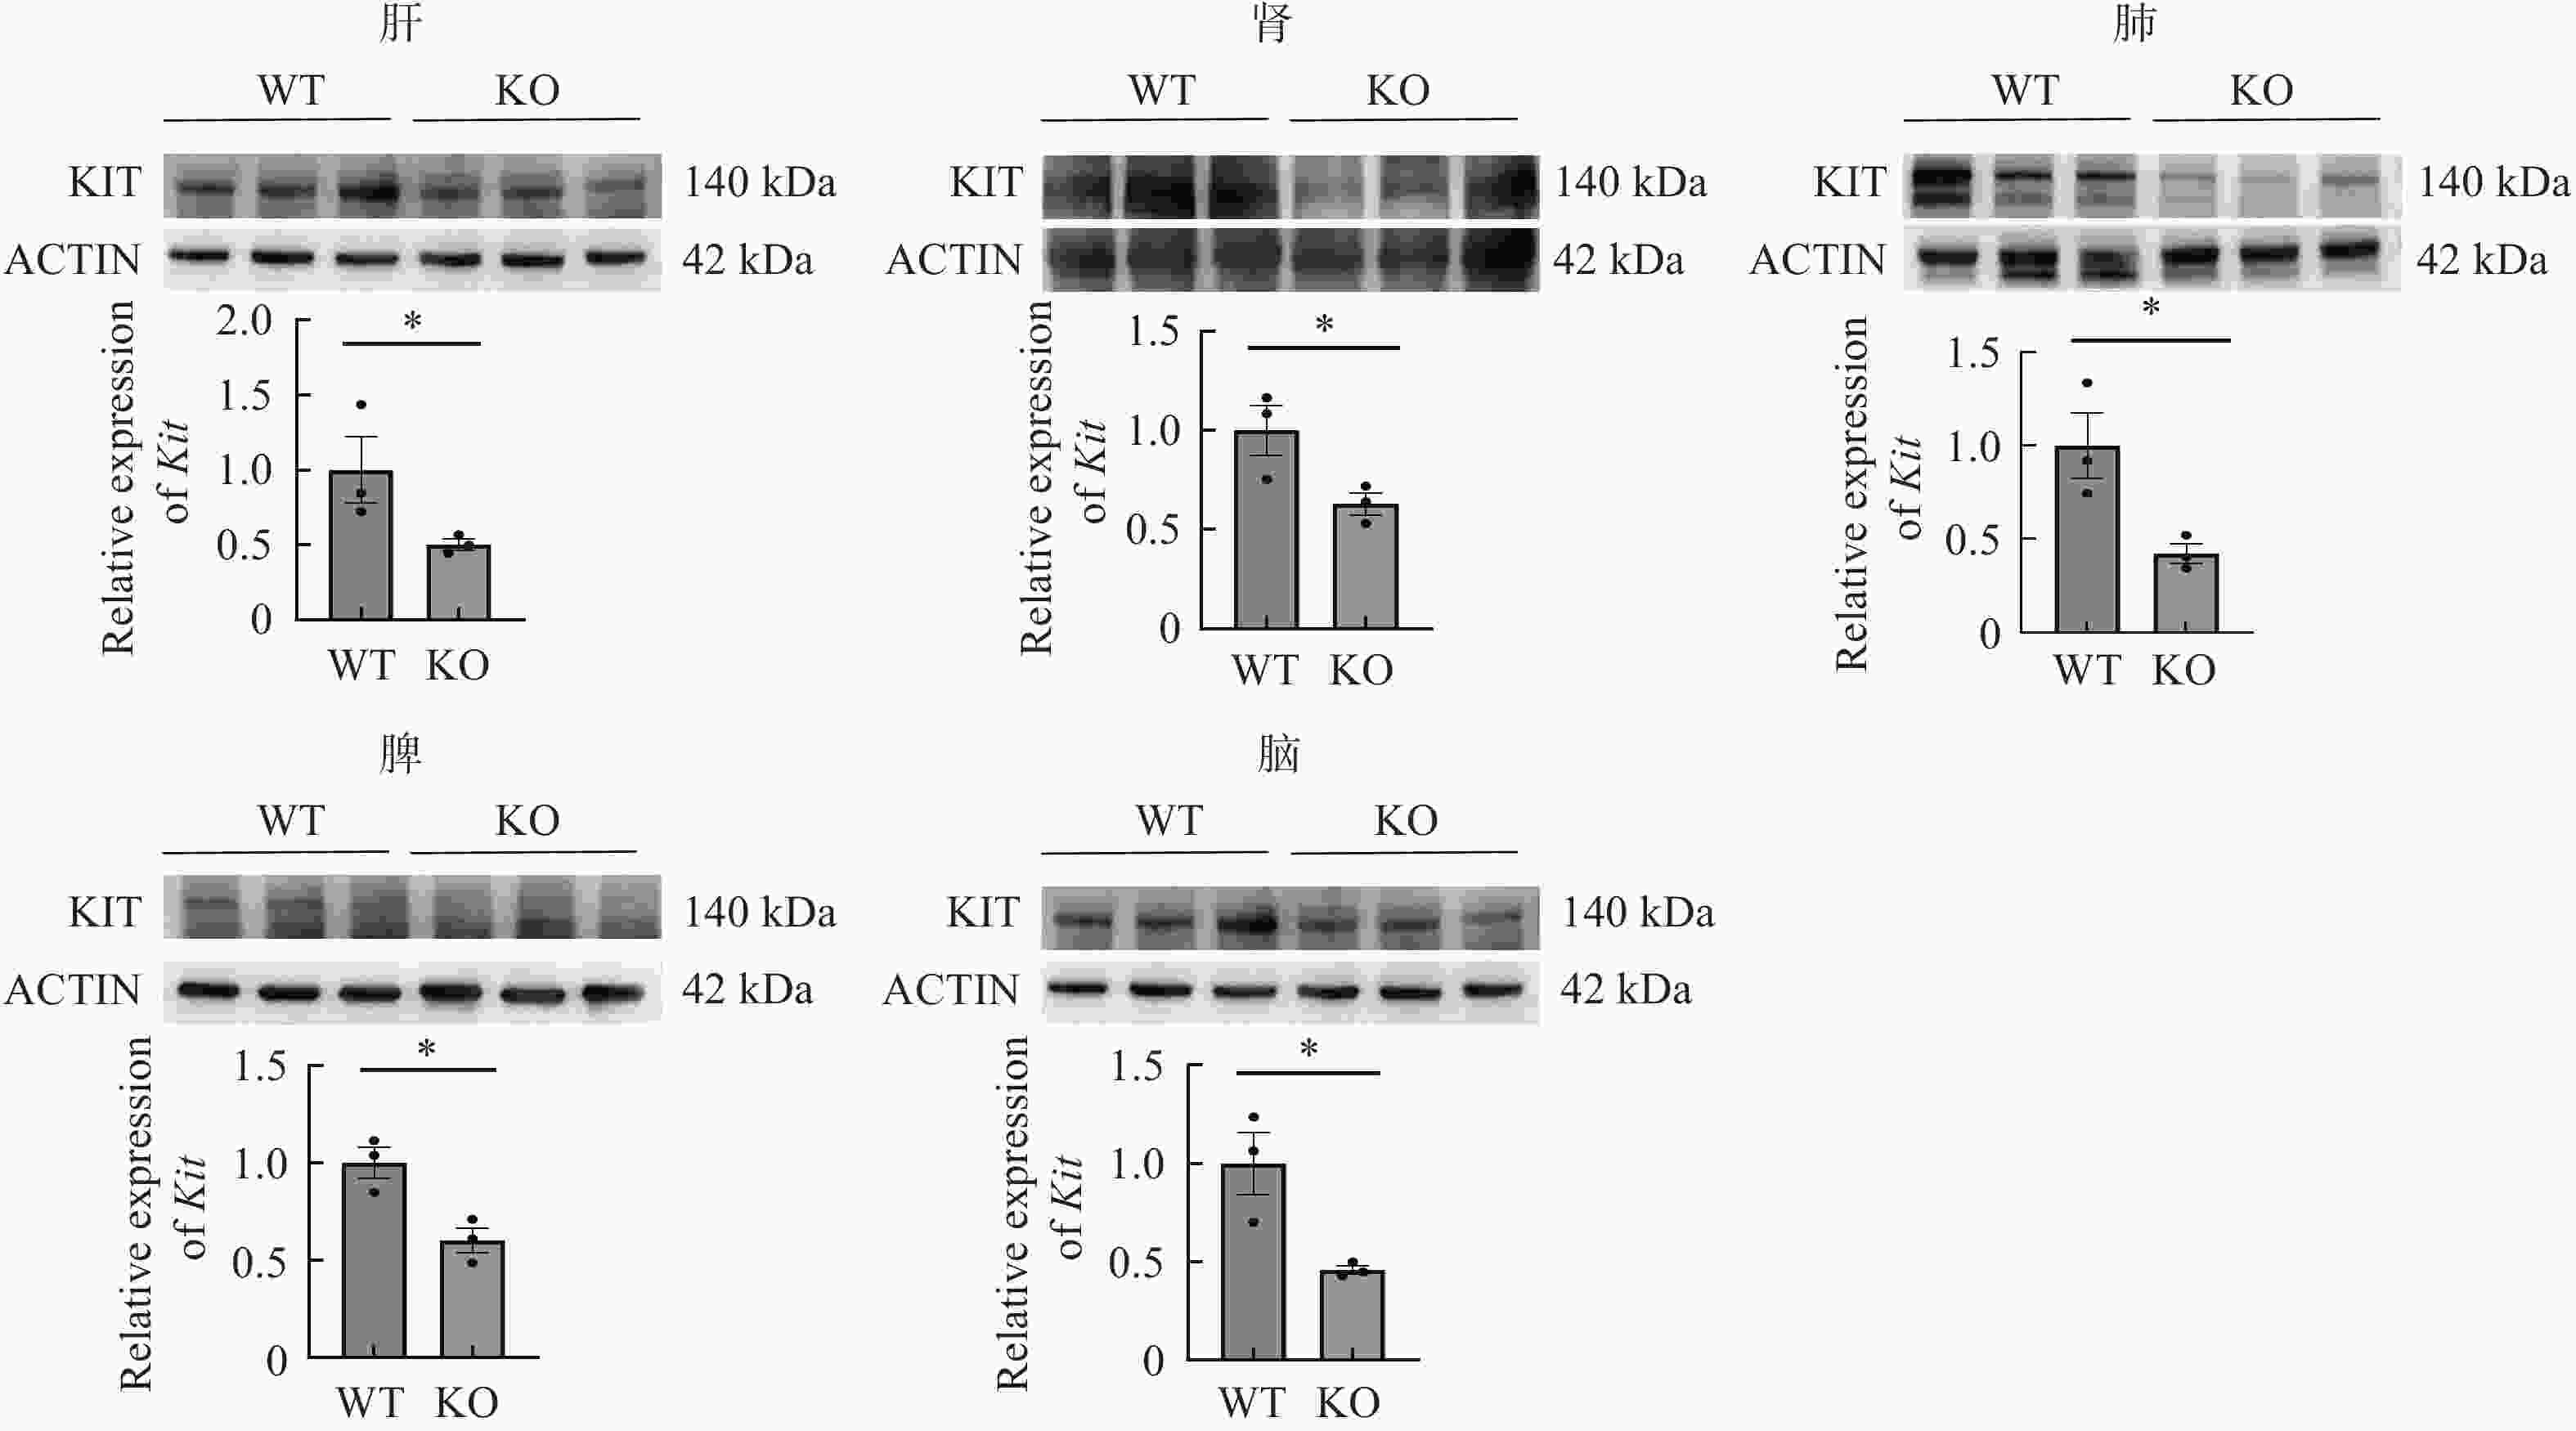
图 3 Kit+/-小鼠各组织中KIT蛋白相对表达量(n=3)
-
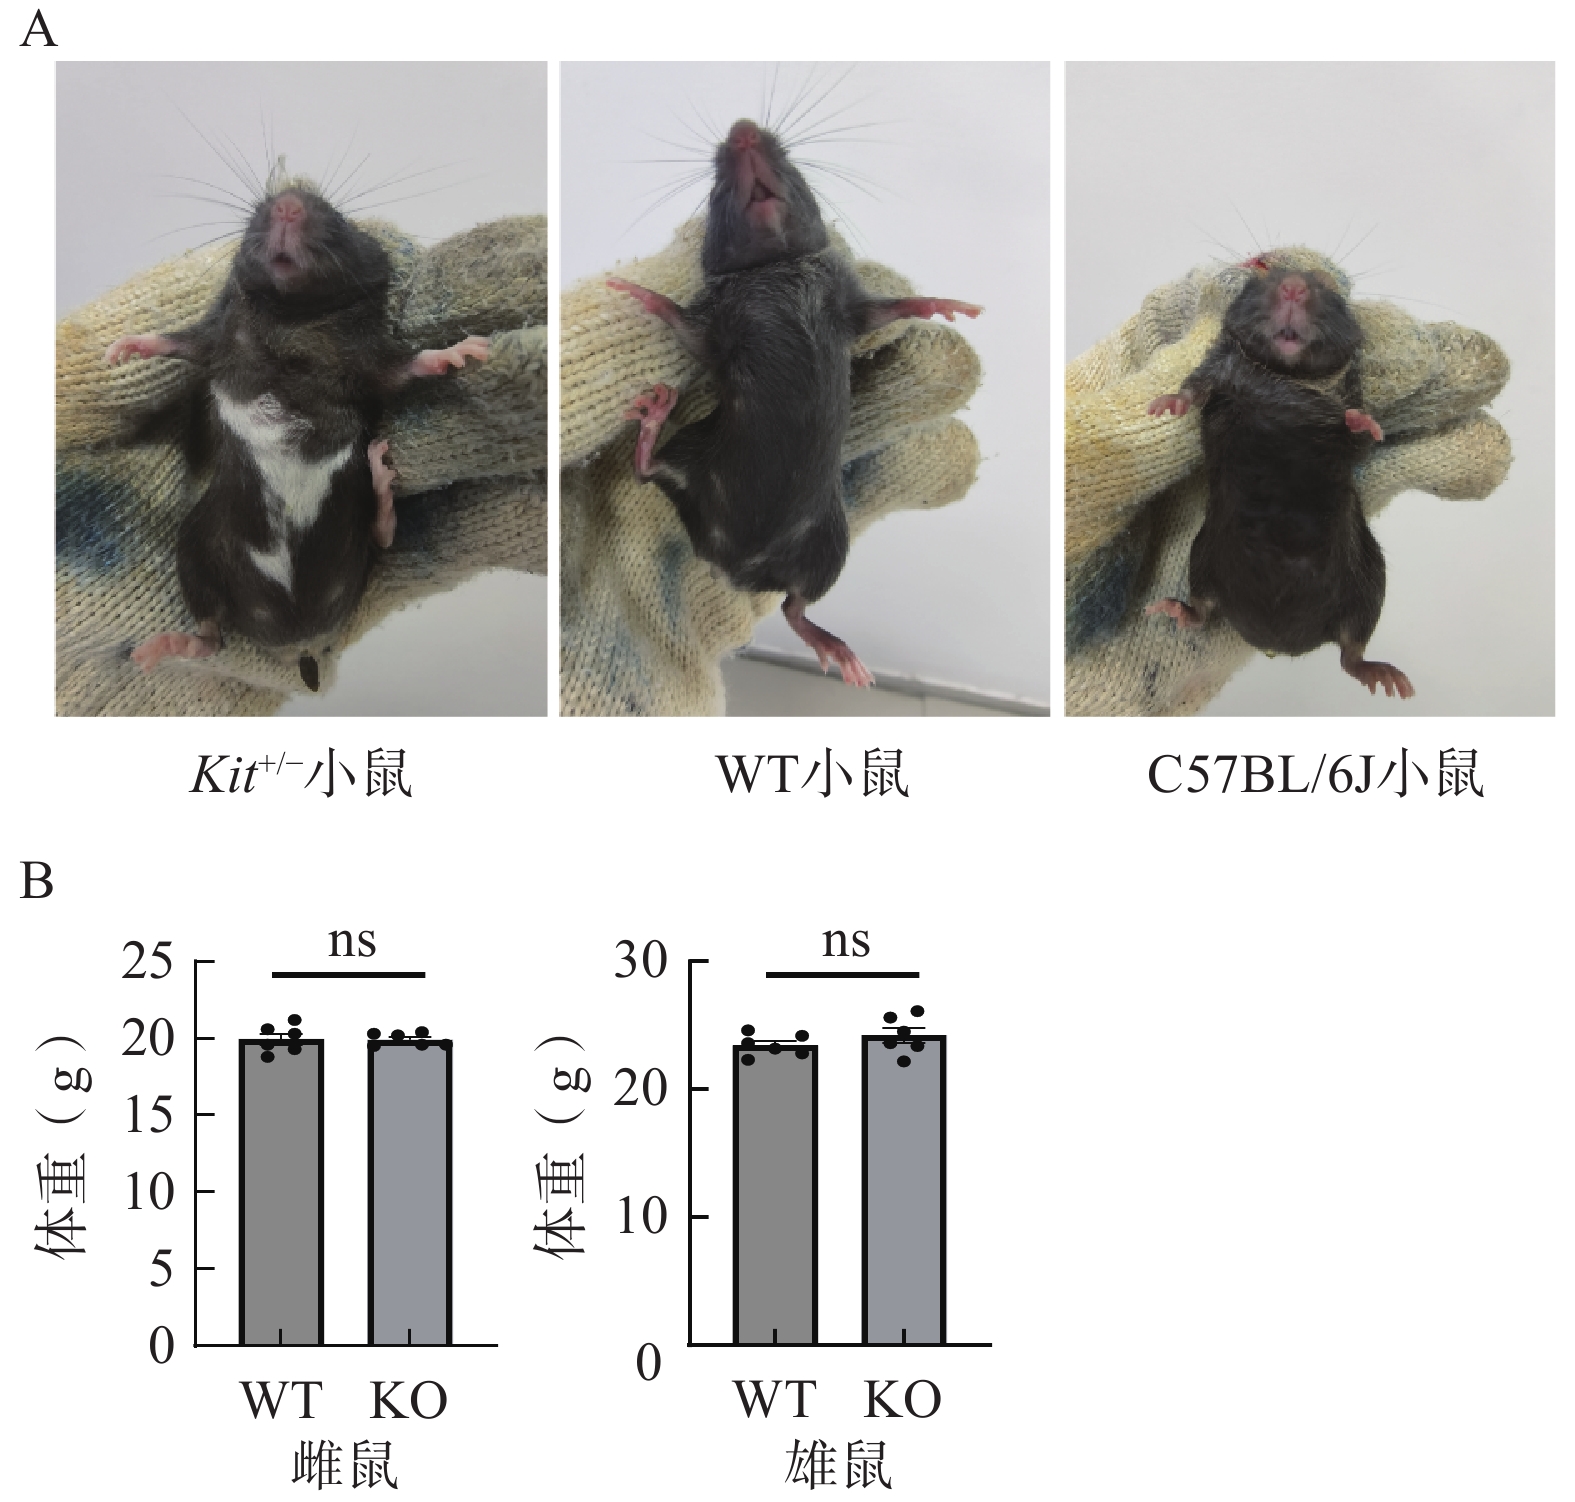
为了验证Kit+/-小鼠是否出现色素脱失的自发性表型,我们将繁育以来得到的所有子代进行基因鉴定后分为Kit+/-与WT两组,均采用相同的饮食和饮水喂养,观察其毛发颜色情况,可以观察到Kit+/-小鼠腹部出现色素脱失表型,并且在后续的子代繁育中可观察到Kit+/-小鼠刚出生一周龄以内腹部便出现色素脱失表型。如图4A所示,Kit+/-组小鼠腹部均出现明显的色素脱失表型,色素脱失的形状大小存在随机性,且雌雄之间没有明显差异,而WT组腹部则与普通C57BL/6J小鼠毛色一致,结果证明本研究构建的Kit+/-小鼠模型均表现出明显的色素脱失表型。我们同时也比较了两组小鼠的体重情况,选取了8周龄的Kit+/-小鼠与WT小鼠雌雄各6只,称重并记录体重如图4B所示,两组体重没有显著性差异。
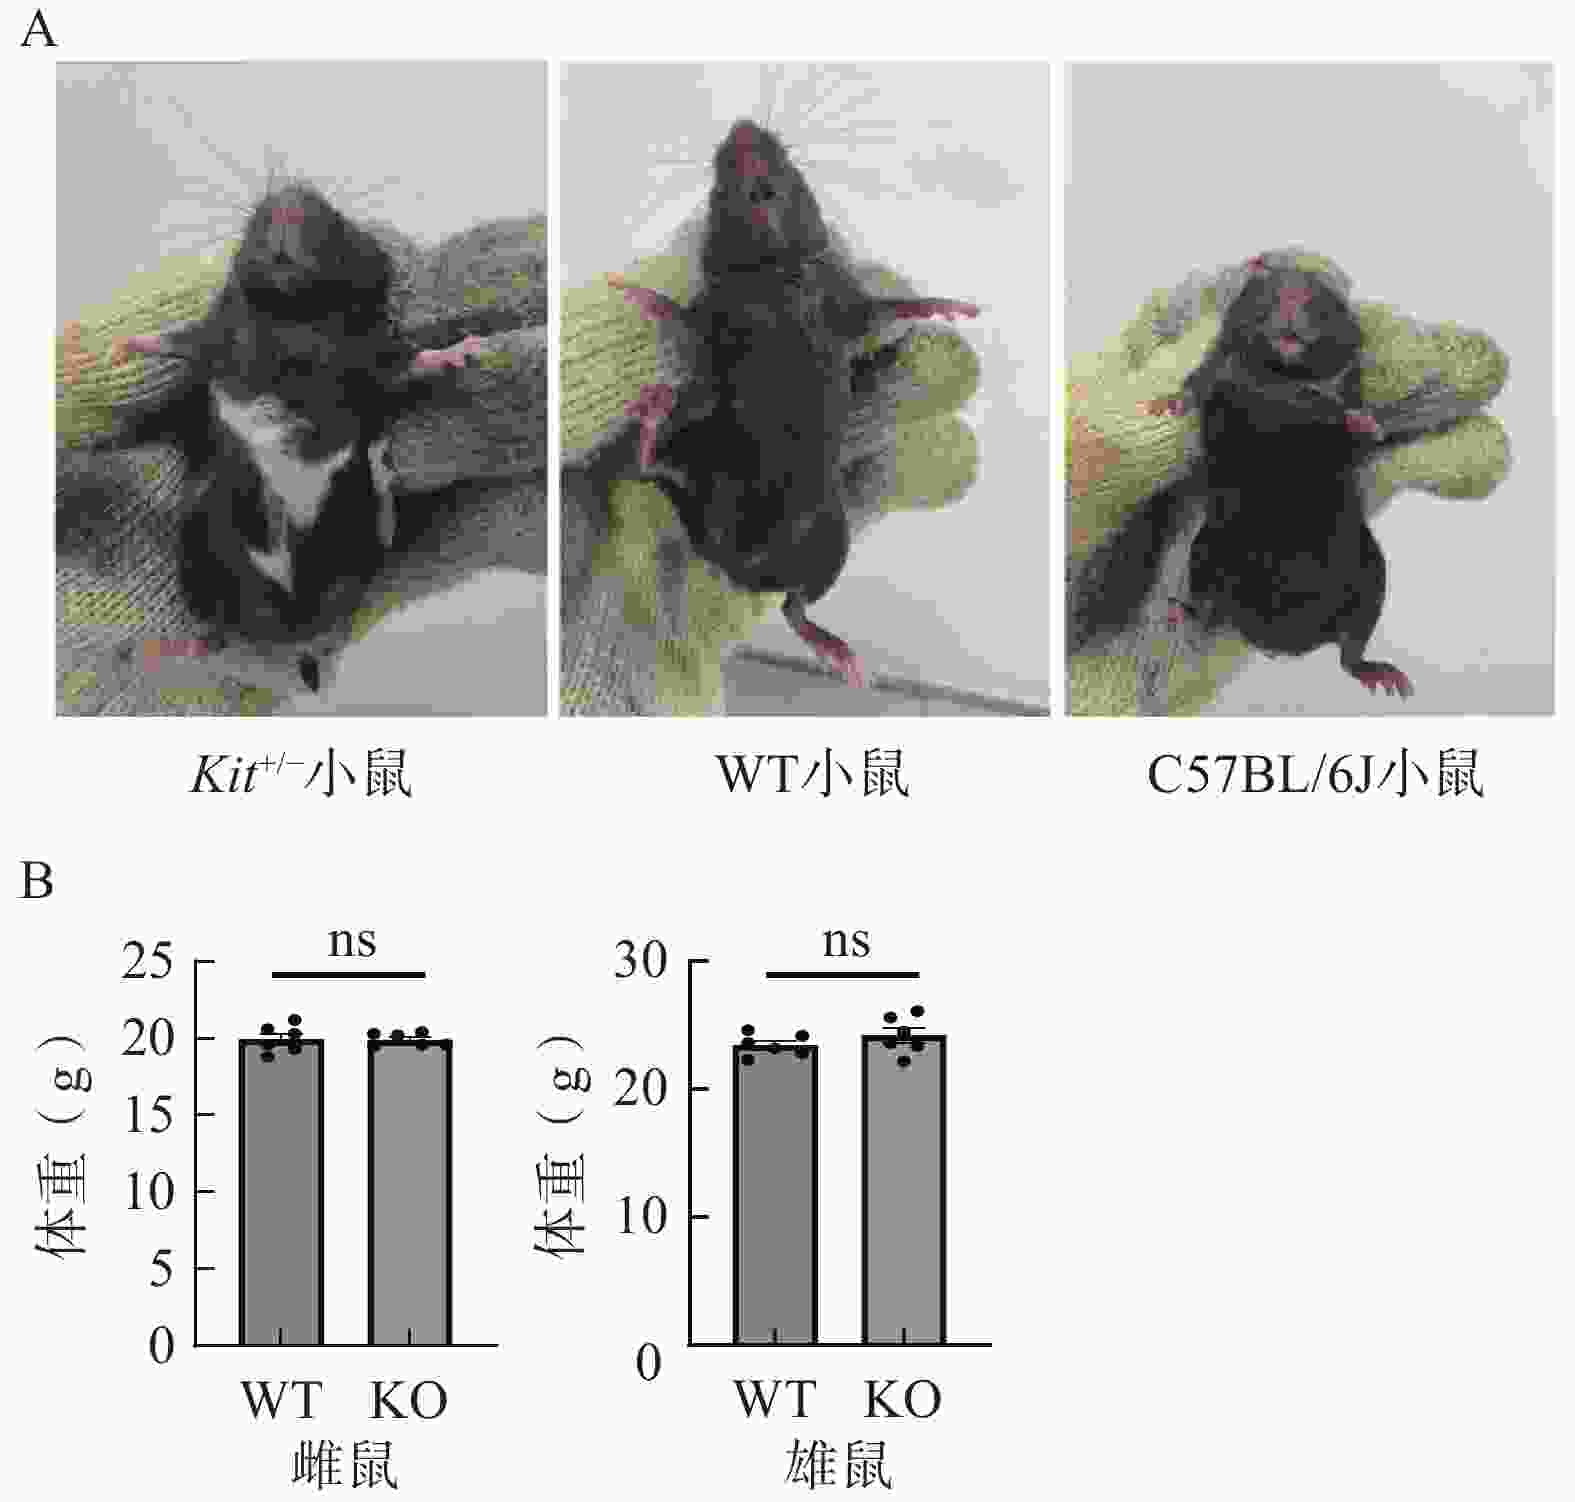
图 4 小鼠腹部毛发与体重对比(n=6)
-
本研究采用商业化CRISPR/Cas9基因编辑技术制备的Kit杂合敲除首代小鼠,通过回交繁育、分子检测与整体表型观测,系统完成全身性Kit+/-小鼠模型的鉴定、验证与表型确认,建立一套可稳定传代的标准化Kit杂合敲除小鼠实验体系,为KIT受体介导的多通路体内功能研究提供可靠动物工具。
CRISPR/Cas9基因编辑技术凭借靶向特异性强、基因修饰效率高等优势,已成为基因修饰动物模型制备的主流手段。本研究未自主开展受精卵显微注射、sgRNA设计与胚胎移植等模型构建环节,而是直接从公司采购经CRISPR/Cas9打靶获得的F0代Kit+/-嵌合小鼠;受基因切割效率限制,商品化F0代小鼠普遍存在多基因型嵌合、遗传不稳定的问题,无法直接用于稳定的功能实验。为获得遗传背景均一、基因型稳定的实验动物,本研究将购入的F0杂合小鼠与标准C57BL/6J野生型小鼠连续回交,筛选获得F1代Kit+/-杂合个体并完成保种建系。本研究配套建立双引物组合PCR基因型鉴定方案,可清晰区分450 bp基因敲除特异性条带与515 bp野生型条带,分型结果直观、重复性好,适用于繁育过程中大批量子代小鼠的基因型筛查。已有大量研究证实,Kit基因纯合敲除会严重阻滞胚胎造血系统发育,引发胚胎致死或围产期死亡[12];本研究在F1杂合小鼠互交繁育过程中,经持续基因型鉴定从未检出Kit+/-纯合子代,与现有文献报道完全一致。因此本研究选用Kit+/-杂合小鼠作为实验模型,既能实现全身多组织Kit基因转录与蛋白表达水平显著下调,又不会造成小鼠生长、繁育障碍,可满足长期动物在体干预、多组织分子检测等各类体内实验需求。
为全面评价商品化Kit杂合敲除小鼠的敲除效果,本研究选取肝、肾、肺、脾、脑五种核心组织,分别从转录与蛋白水平开展定量验证。qPCR检测结果显示,Kit+/-小鼠各组织mRNA相对表达量均显著低于同背景野生型小鼠;Western blot蛋白检测结果进一步证实,各组织KIT蛋白表达同步出现明显下调。上述分子实验结果证实,经回交纯化后的Kit+/-杂合小鼠在全身多脏器中均存在稳定、有效的基因敲低,可用于探究KIT受体功能下调状态下神经、造血、免疫等通路的体内生物学效应。
从宏观整体表型层面,本研究系统观察并确认Kit+/-小鼠特征性自发性腹部色素脱失表型,该外观特征可作为繁育过程中快速初筛敲除个体的直观标记。KIT与其配体SCF共同构成调控黑色素细胞发育、迁移及黑色素合成的核心信号轴,二者结合后可激活下游PI3K、MAPK信号通路,直接调控黑色素前体细胞的皮肤定植与分化成熟;当Kit基因表达下调、细胞膜KIT受体丰度不足时,皮肤黑色素细胞增殖分化进程受阻,黑色素沉积出现缺陷,最终表现为毛发色素缺失[11]。本研究中所有经基因型鉴定确认为Kit+/-的小鼠均稳定出现腹部色素脱失表型,而C57BL/6J野生型小鼠无此特征,宏观表型与分子水平Kit表达下调结果相互印证。该肉眼可识别的特征表型能够简化繁育阶段的初筛流程,在基因型鉴定前快速初步区分敲除个体,降低实验人力与时间成本;同时该稳定色素脱失表型也提示本Kit+/-小鼠可作为色素发育异常相关疾病的简易动物模型,拓展了模型在皮肤发育、色素脱失类疾病研究中的应用价值。
综上,本研究以CRISPR/Cas9编辑的F0代Kit杂合小鼠为基础,通过与C57BL/6J野生小鼠回交纯化,成功获得遗传稳定、背景均一的全身性Kit+/-杂合敲除小鼠,并从基因型、多组织mRNA水平及蛋白水平、整体自发表型进行系统验证。该模型全身多组织Kit敲低效果稳定,同时具备辨识度高的腹部色素脱失特征表型,可为后续开展KIT介导的配体信号、造血稳态、皮肤感觉神经功能、肥大细胞过敏反应、黑色素发育等相关体内机制研究提供实验动物工具。且KIT作为METRNL高亲和力受体参与调控血管生成与心脏修复等[9],因此该Kit+/-敲除小鼠模型也可用于KIT介导的METRNL相关功能调控及体内代谢研究。
Construction and validation of kit gene knockout mouse model and confirmation of its spontaneous phenotypes
-
摘要:
目的 构建全身性Kit基因敲除杂合子小鼠(Kit+/-)模型。 方法 从公司购买基于CRISPR/Cas9技术打靶得到阳性杂合子F0代小鼠(Kit+/-),受切割效率影响,F0代小鼠可能出现多种基因型并存的状态,将阳性F0代小鼠与C57BL/6J野生型背景鼠回交后获得目的基因小鼠Kit+/-。对该目的基因小鼠进行基因型鉴定,并收集小鼠的肝、肾、肺、脾、脑组织,利用实时荧光定量PCR技术、蛋白免疫印迹实验,考察Kit基因敲除情况,同时观察并记录Kit+/-小鼠特征性自发表型。 结果 基因型鉴定成功获得杂合子Kit基因敲除小鼠(Kit+/-),Kit+/-小鼠的组织mRNA表达水平和组织蛋白表达水平均显著低于WT小鼠,且敲除鼠腹部均出现色素脱失表型。 结论 本研究成功构建、分子验证并完成自发性表型确认的全身性Kit+/-杂合敲除小鼠模型,可为KIT受体介导的神经、心血管、造血、免疫、皮肤发育等多通路体内功能研究提供可靠动物工具。 -
关键词:
- CRISPR/Cas9 /
- Kit /
- 基因敲除 /
- 小鼠
Abstract:Objective To construct a systemic heterozygous Kit gene knockout mouse model Kit+/-. Methods F0 generation heterozygous Kit+/- mice generated by CRISPR/Cas9 gene targeting were purchased commercially. Due to limited cleavage efficiency, mosaicism with multiple genotypes was commonly observed in F0 founders. The positive F0 mice were backcrossed with C57BL/6J wild-type(WT)mice to obtain stable Kit+/- heterozygous offspring. Genotyping was performed on all progeny mice. Liver, kidney, lung, spleen and brain tissues were harvested from experimental animals. Real-time quantitative PCR(qPCR)and Western blot were conducted to verify the knockout efficiency of the Kit gene. Meanwhile, characteristic spontaneous phenotypes of Kit+/- mice were continuously observed and recorded. Results Genotyping confirmed the successful acquisition of stable heterozygous Kit knockout mice Kit+/-. Both Kit mRNA and KIT protein expression levels in all detected tissues of Kit+/- mice were significantly lower than those in WT mice. In addition, all Kit+/- mice exhibited a consistent spontaneous phenotype of abdominal depigmentation. Conclusion We successfully established and molecularly validated a systemic heterozygous Kit+/- knockout mouse model, with systematic identification of its inherent spontaneous phenotype. This genetically stable animal model provides a reliable in vivo tool for investigating KIT receptor-mediated signaling pathways involved in neural development, cardiovascular function, hematopoiesis, immune regulation and skin morphogenesis. -
Key words:
- CRISPR/Cas9 /
- Kit gene /
- gene knockout /
- mice
-
图 1 全身性Kit基因敲除杂合子小鼠(Kit+/-)模型的构建以及基因鉴定
A. Cas9蛋白与sgRNA结合后特异性切除Kit-201外显子2- 4间的序列,蓝色框为编码区,白色框为非编码区;B. Kit+/-小鼠繁殖流程;C.F0代Kit+/-小鼠DNF电泳条带图,其中1-4为F0代Kit+/-小鼠,5和6为C57BL/6J小鼠;D.F1代小鼠DNA电泳条带图,其中2、6、9、10、14、15和17为Kit+/-小鼠,1、3-5、7、8、11-14、16、18和19为WT小鼠。
表 1 PCR扩增引物
PCR
反应引物
名称引物序列 片段大小 PCR① F1 TGTTCAGTCCTTGGCAGCCTTG WT: 6628 bp
KO: 450 bpR1 GGGATTGTGCTCTGTAAGGTTAGC PCR② F2 GGTTGACCCAGAGAAAGCTGTG WT: 515 bp
KO: 0 bpR2 CACGTAAATAGAACTCGTGAGGCC 注:野生型:PCR①反应产生WT条带,由于条带过大,可能无法获得清晰条带,PCR②反应获得WT条带;杂合子:PCR①反应获得KO条带,PCR②反应获得WT条带;纯合子:PCR①反应获得KO条带,PCR②反应未产生产物。  下载: 导出CSV
表 2 实时荧光定量PCR实验中的引物序列
基因名称 正向引物 反向引物 Kit ACGTGTTTGTTAGAG
ATCCTGCCATTGGACACCTGTGG
GTCTGGapdh GTATGACTCCACTCAC
GGCAAAGGTCTCGCTCCTGGAA
GATG
下载: 导出CSV
-
[1] KIM J O, KIM K H, PARK S G. Abstract 2902: Antibody-drug conjugate targeting c-kit/CD117 suppresses imatinib resistant cancer cells[J]. Cancer Res, 2020, 80(16_Supplement): 2902. [2] ABBASPOUR BABAEI M, KAMALIDEHGHAN B, SALEEM M, et al. Receptor tyrosine kinase(c-Kit)inhibitors: a potential therapeutic target in cancer cells[J]. Drug Des Dev Ther, 2016, 10: 2443-2459. doi: 10.2147/DDDT.S89114 [3] TUTTLE A M, POMAVILLE M B, DELGADO K C, et al. C-kit receptor maintains sensory axon innervation of the skin through src family kinases[J]. J Neurosci, 2022, 42(36): 6835-6847. doi: 10.1523/JNEUROSCI.0618-22.2022 [4] XIAO Z Z, ZHUO Y Q, LI R, et al. The recent advances of mast cells in the pathogenesis of atopic dermatitis[J]. Front Allergy, 2025, 6: 1668742. doi: 10.3389/falgy.2025.1668742 [5] GAO X, CARPENTER R S, BOULAIS P E, et al. Regulation of the hematopoietic stem cell pool by C-Kit-associated trogocytosis[J]. Science, 2024, 385(6709): eadp2065. doi: 10.1126/science.adp2065 [6] FATHI E, MESBAH-NAMIN S A, VIETOR I, et al. Mesenchymal stem cells cause induction of granulocyte differentiation of rat bone marrow C-kit(+)hematopoietic stem cells through JAK3/STAT3, ERK, and PI3K signaling pathways[J]. Iran J Basic Med Sci, 2022, 25(10): 1222-1227. [7] FARAHZADI R, VALIPOUR B, ANAKOK O F, et al. The effects of encapsulation on NK cell differentiation potency of C-kit+ hematopoietic stem cells via identifying cytokine profiles[J]. Transpl Immunol, 2023, 77: 101797. doi: 10.1016/j.trim.2023.101797 [8] FATHI E, FARAHZADI R, VALIPOUR B. Alginate/gelatin encapsulation promotes NK cells differentiation potential of bone marrow resident C-kit+ hematopoietic stem cells[J]. Int J Biol Macromol, 2021, 177: 317-327. doi: 10.1016/j.ijbiomac.2021.02.131 [9] REBOLL M R, KLEDE S, TAFT M H, et al. Meteorin-like promotes heart repair through endothelial KIT receptor tyrosine kinase[J]. Science, 2022, 376(6599): 1343-1347. doi: 10.1126/science.abn3027 [10] HICKS N J, CROZIER R W E, MACNEIL A J. JNK signaling during IL-3-mediated differentiation contributes to the c-kit-potentiated allergic inflammatory capacity of mast cells[J]. J Leukoc Biol, 2023, 114(1): 92-105. doi: 10.1093/jleuko/qiad050 [11] SUN G J, LIANG X Y, QIN K, et al. Functional analysis of KIT gene structural mutations causing the porcine dominant white phenotype using genome edited mouse models[J]. Front Genet, 2020, 11: 138. doi: 10.3389/fgene.2020.00138 [12] RAJAN V, PRYKHOZHIJ S V, PANDEY A, et al. KIT D816V is dimerization-independent and activates downstream pathways frequently perturbed in mastocytosis[J]. Br J Haematol, 2023, 202(5): 960-970. doi: 10.1111/bjh.18116 -

 点击查看大图
图(4) / 表(2)
计量
- 文章访问数: 2
- HTML全文浏览量: 0
- PDF下载量: 0
- 被引次数: 0
