

 下载:

-
阿霉素(Doxorubicin,DOX)是临床一线蒽环类化疗药物,但其剂量依赖性的心脏毒性是制约其临床应用的核心瓶颈。其毒性反应的临床表现呈多样性:急性心脏毒性以心肌炎和心肌细胞损伤为主要特征;慢性心脏毒性则可能在治疗结束数月乃至数年后出现,心力衰竭的发生率高达20%[1]。目前,美国食品药品监督管理局(FDA)唯一批准的一款用于预防阿霉素心脏毒性的药物右雷佐生,因潜在的胎儿毒性及骨髓抑制等不良反应,临床选择极为有限[1]。因此,探寻安全有效的防治策略具有重要的临床意义。
升陷汤是近代医家张锡纯为“大气下陷证”所创立的经典方剂,由黄芪、知母、柴胡、桔梗和升麻五味药组成[2]。本团队前期实验发现,升陷汤及其活性成分在心血管保护方面显示出独特优势。团队前期实验发现,升陷汤可改善阿霉素所致的左心室功能障碍、线粒体损伤及心肌细胞凋亡,在慢性心力衰竭动物模型中同样显示出改善左心室舒张功能的潜力[2-3]。多项研究证实从升陷汤中筛选出的黄芪甲苷、毛蕊异黄酮、芒果苷等主要活性成分,可通过抗氧化应激、抑制铁死亡与焦亡、调控自噬及抗凋亡等多重途径发挥心脏保护作用。上述证据提示升陷汤在阿霉素心脏毒性防治中具有良好的应用前景,但其干预阿霉素心脏毒性的具体分子机制与物质基础尚待系统阐明。
基于此,本文拟系统梳理阿霉素心脏毒性的病理机制网络,并结合升陷汤及其主要活性成分的药理研究进展,深入探讨该方剂干预阿霉素心脏毒性的分子基础与作用靶点,以期为升陷汤的临床转化及后续药物开发提供理论依据和参考。
-
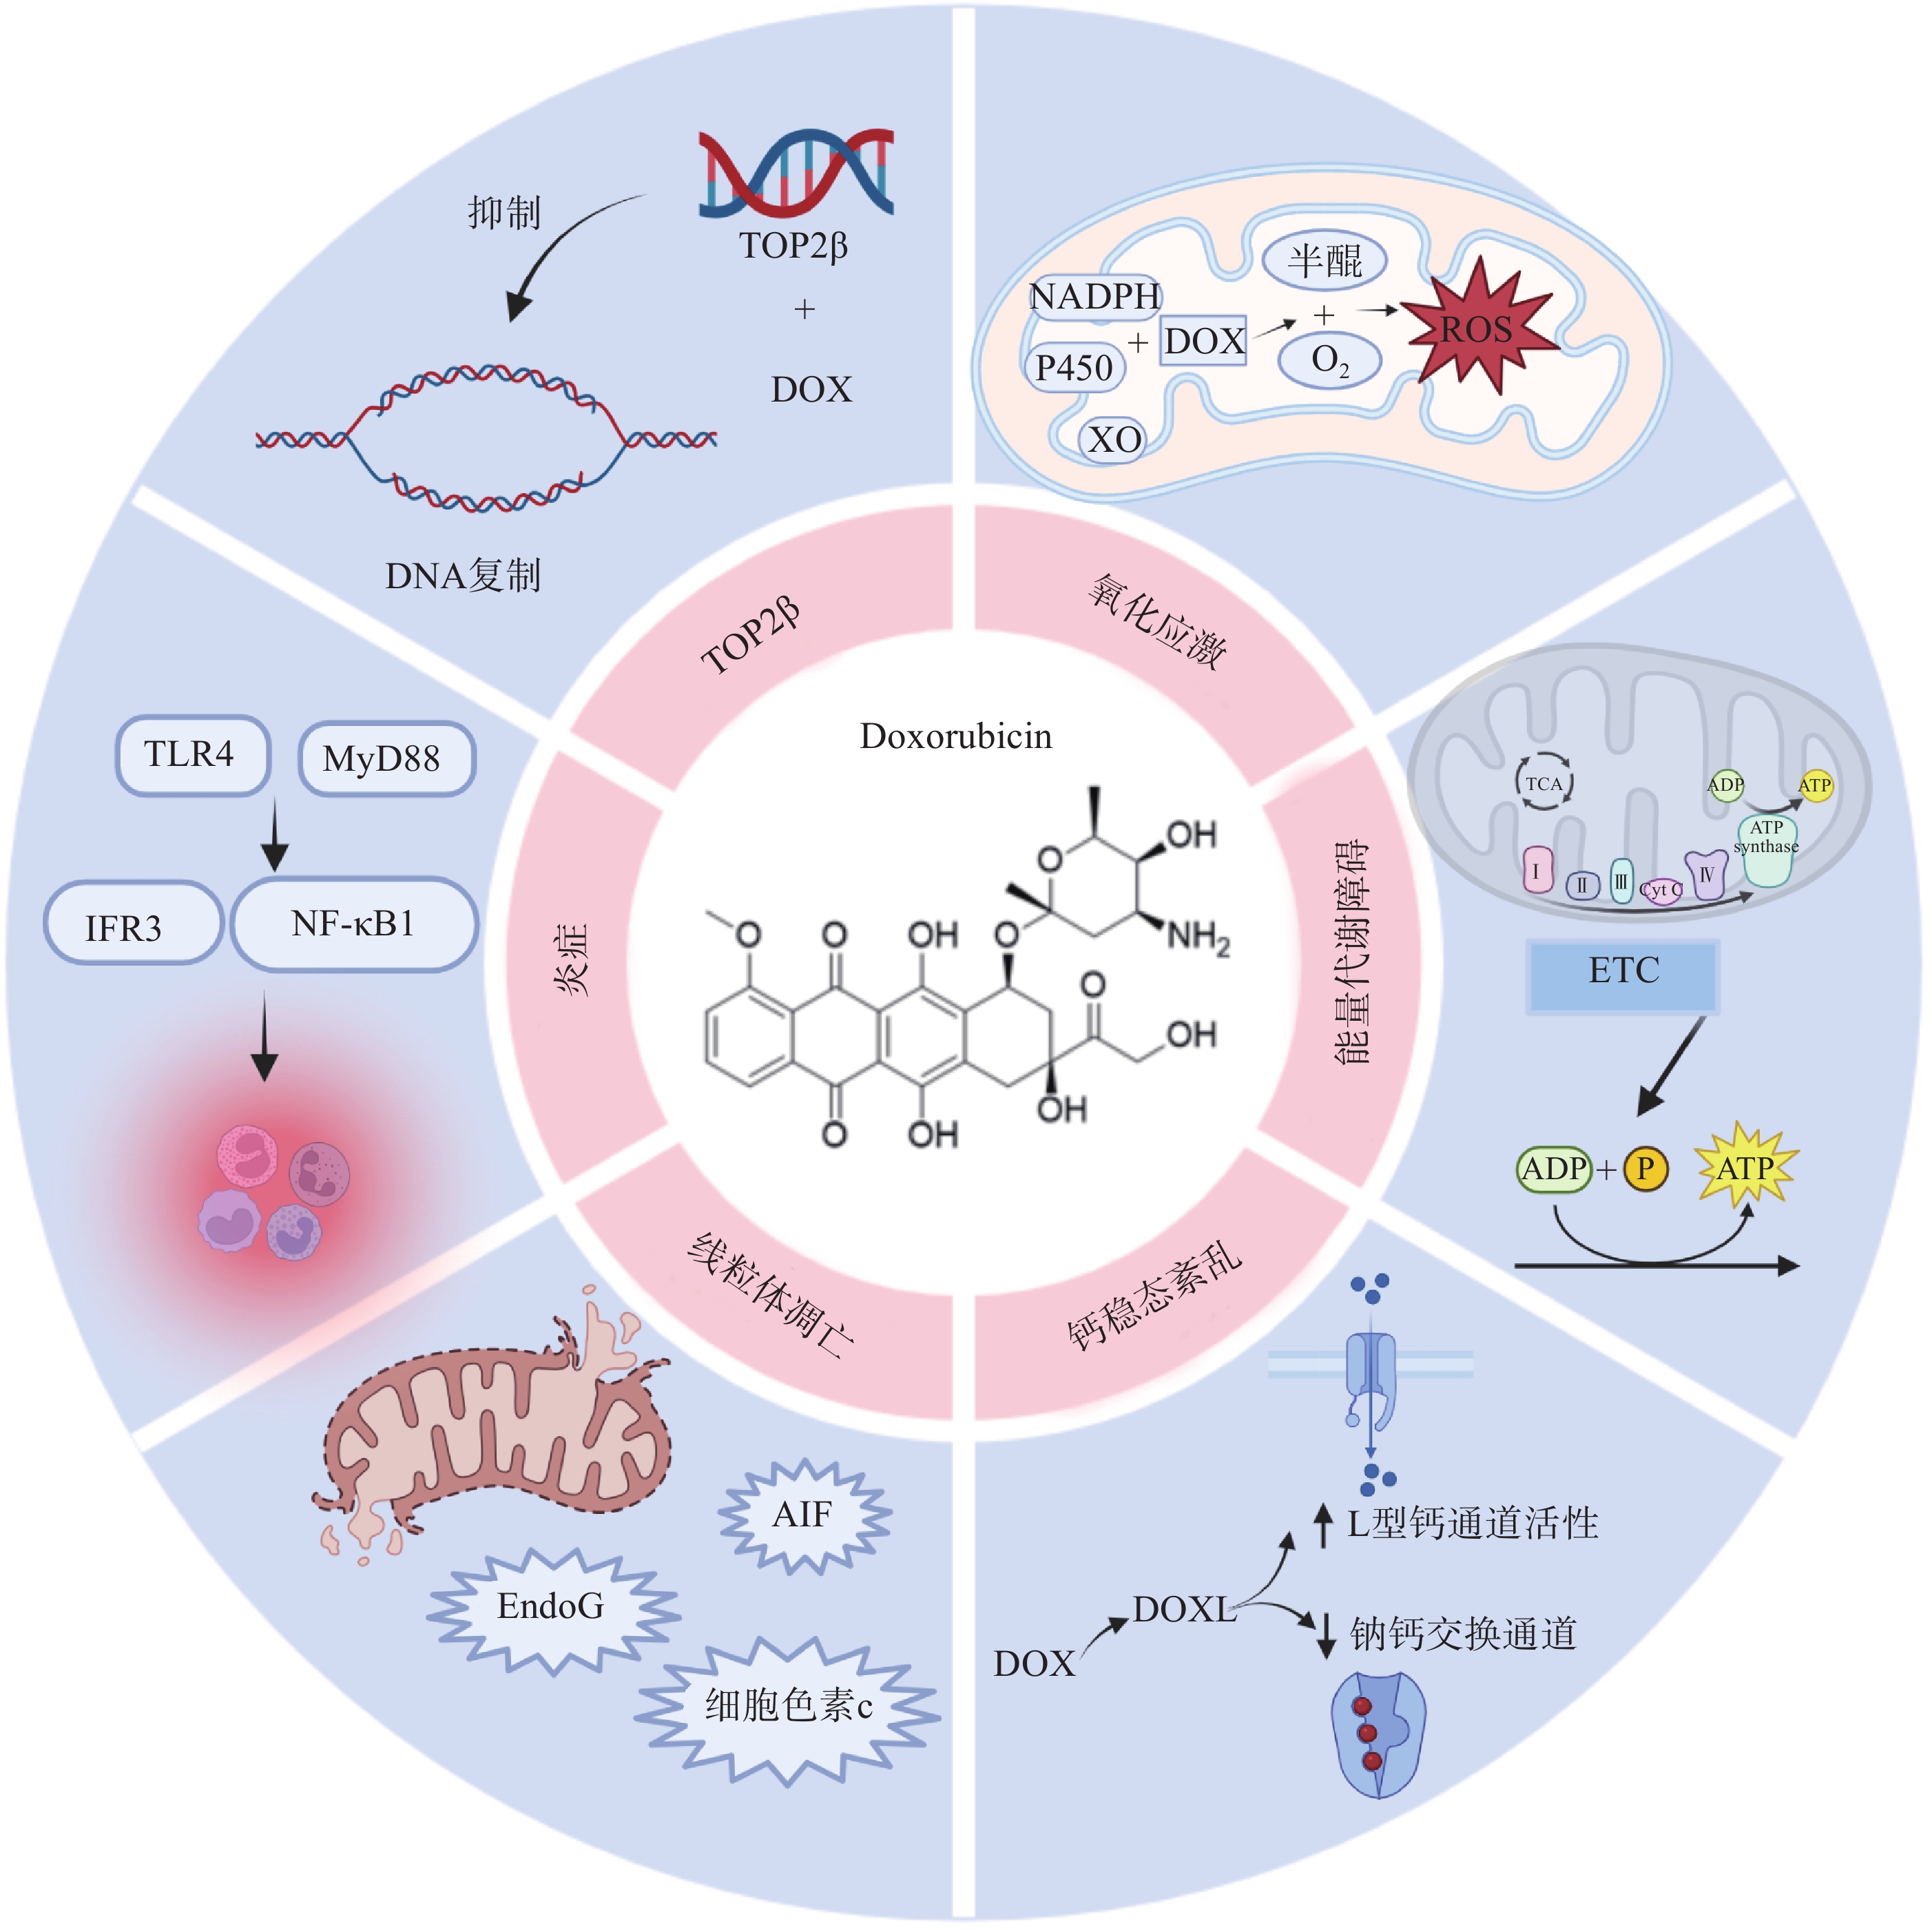
阿霉素的心脏毒性是多重病理过程相互关联、级联放大的结果,其核心可概括为“上游分子损伤→中游线粒体功能障碍(枢纽)→下游效应通路→终末细胞死亡与炎症”的级联网络(图1)。其中,TOP2β介导的DNA损伤是阿霉素进入心肌细胞后最早发生的分子事件,也是整个级联反应的启动环节。该启动事件直接触发线粒体功能障碍,后者处于整个毒性网络的枢纽地位——功能失调的线粒体既是活性氧(ROS)过量生成的主要来源,也是能量代谢障碍与钙稳态失衡的共同基础。由此引发的氧化应激、铁死亡、能量代谢障碍、钙稳态紊乱构成下游效应通路,通过正反馈相互放大,最终共同导向线粒体凋亡与炎症反应,形成不可逆的心功能损害(图1)。各机制间的交叉对话与反馈循环,是阿霉素心脏毒性进行性恶化的核心驱动力。阿霉素可通过TOP2β介导DNA损伤、线粒体氧化应激、能量代谢障碍、胞内钙稳态失衡、线粒体凋亡及TLR4依赖性炎症6条通路协同作用,多途径损伤心肌细胞,最终诱发蒽环类药物相关性心肌病。
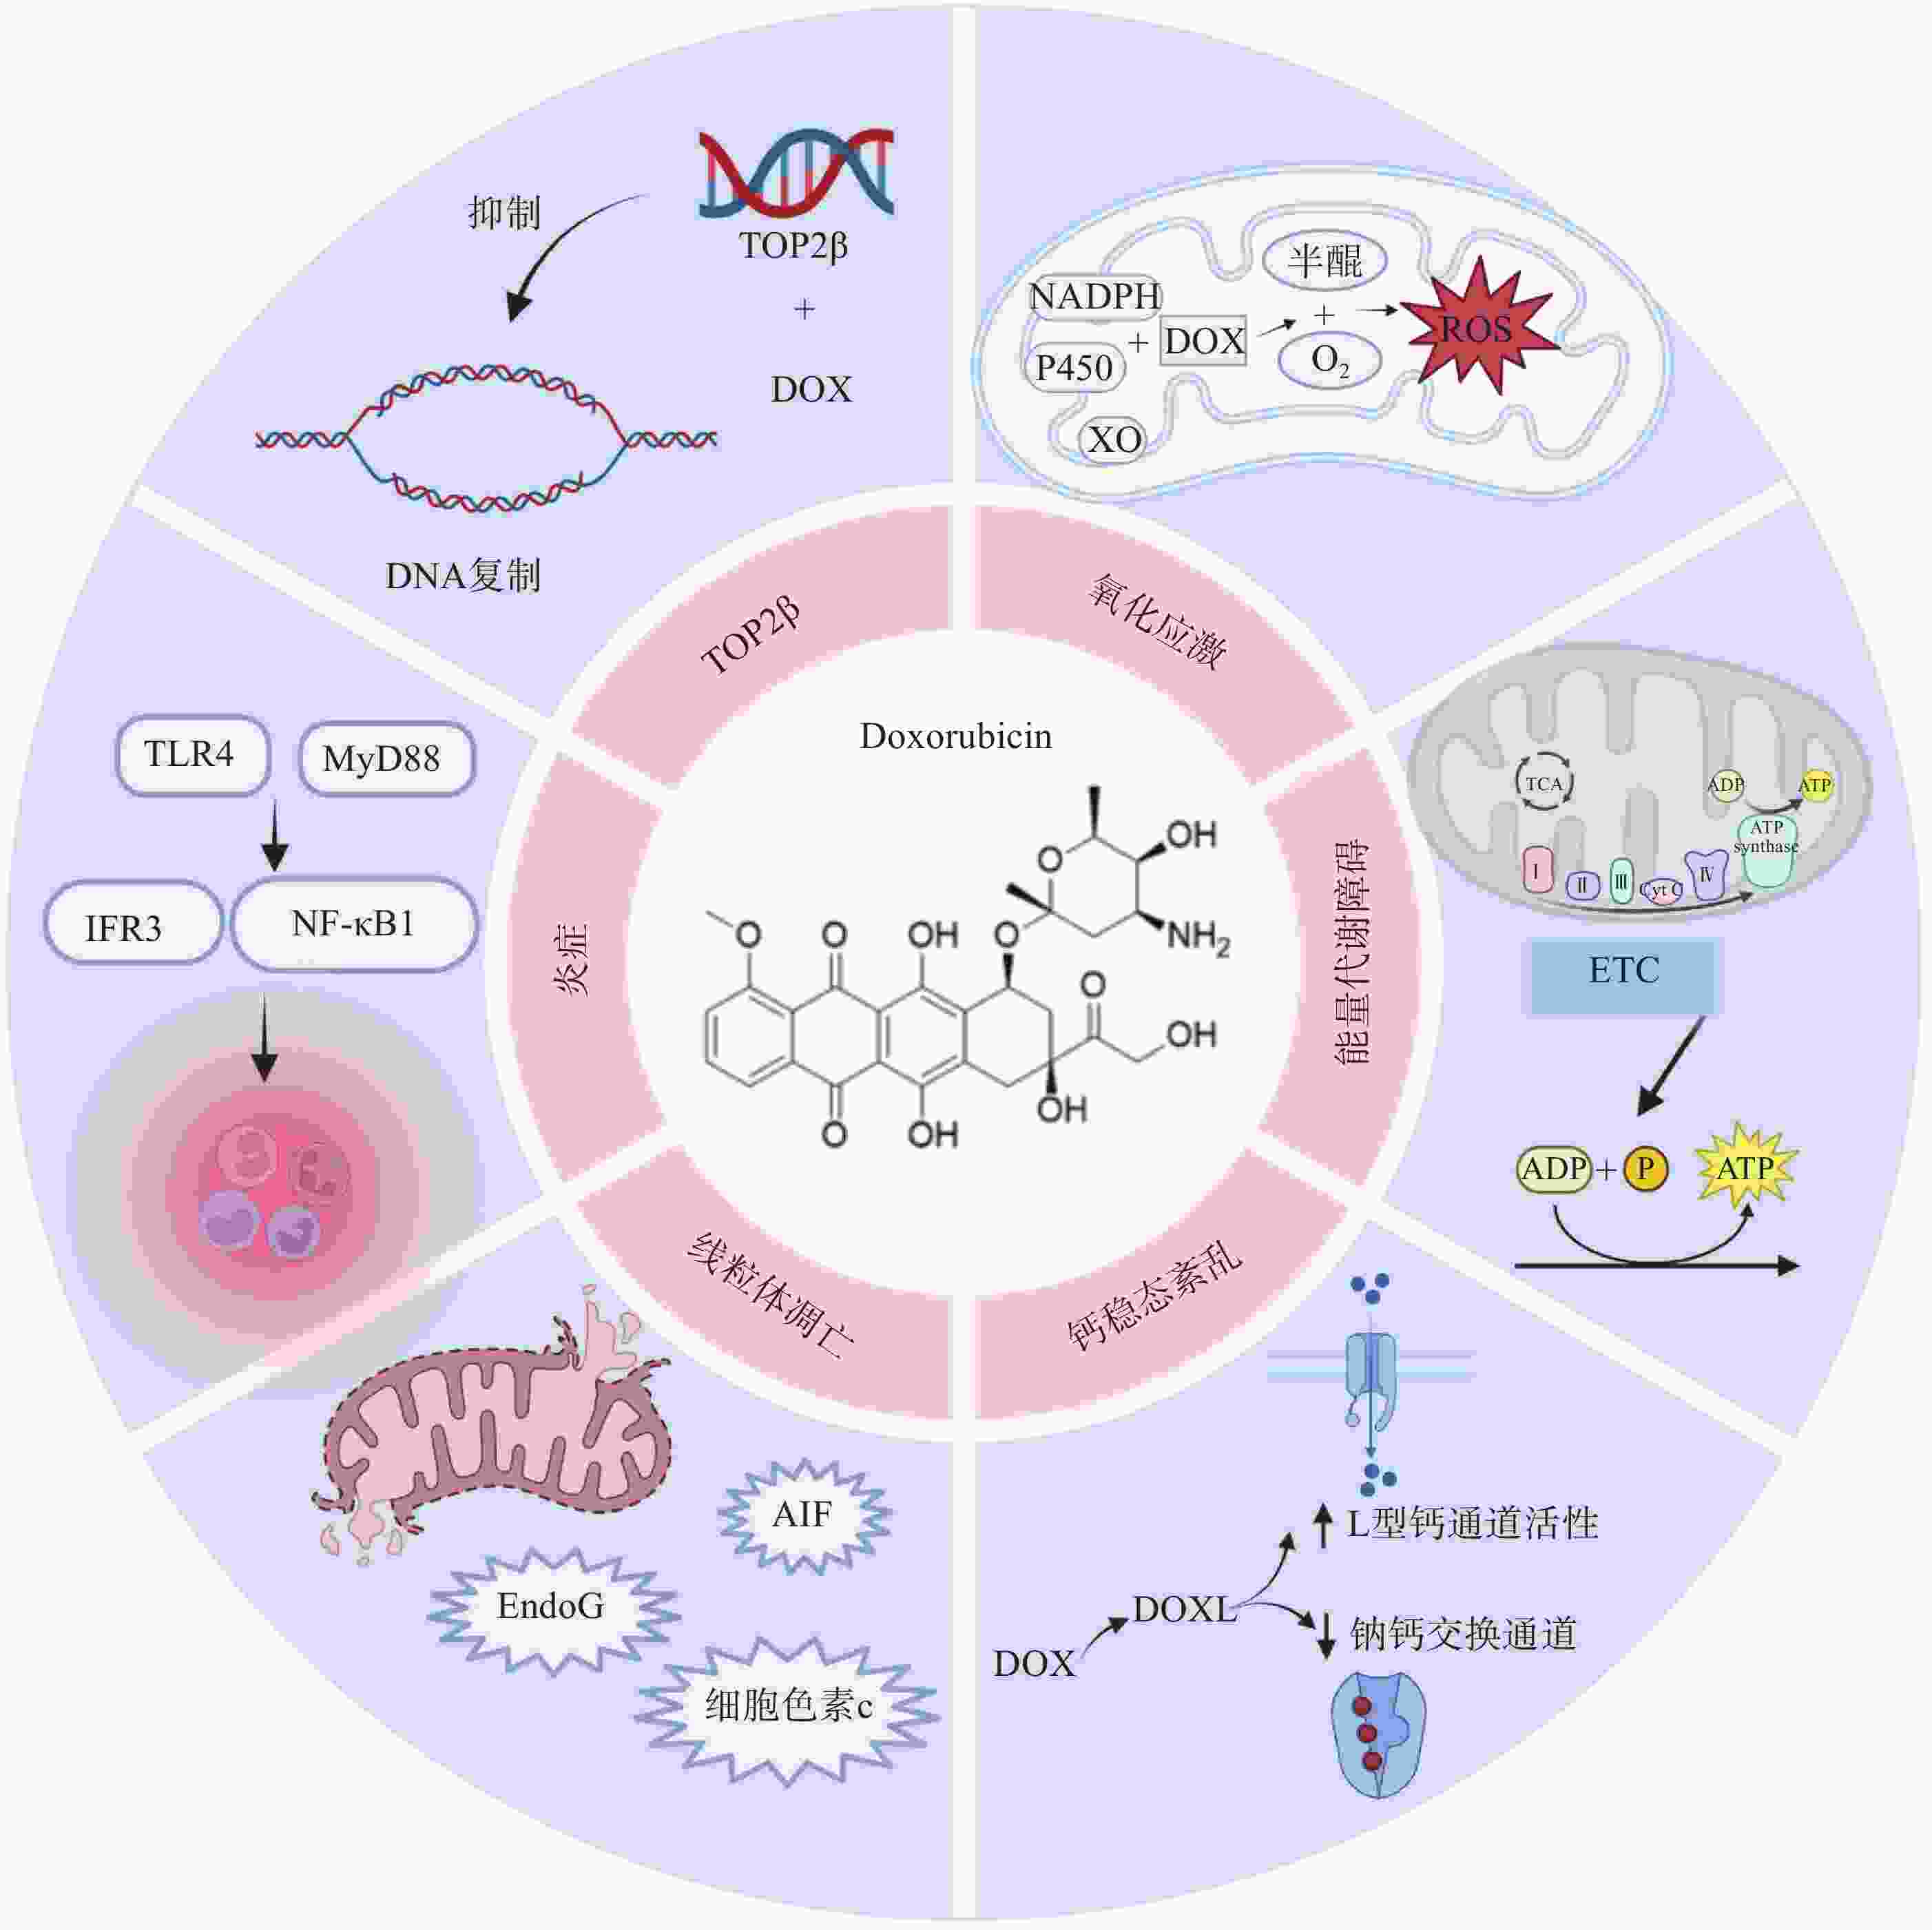
图 1 阿霉素心脏毒性多靶点损伤调控网络
-
阿霉素进入心肌细胞后,主要与拓扑异构酶Ⅱβ(TOP2β)结合形成共价复合物,抑制DNA复制与转录,直接触发心肌细胞凋亡。与肿瘤细胞不同,心肌细胞中阿霉素更倾向于与TOP2β结合,这一选择性差异可能是阿霉素心脏毒性发生的分子基础之一[4]。此外,阿霉素还可嵌入线粒体DNA(mtDNA),干扰线粒体基因组的转录与复制,从源头损害线粒体功能。这一层面的直接损伤是整个阿霉素心脏毒性级联反应的启动环节,通过抑制线粒体生物合成相关基因的表达,触发下游线粒体功能障碍。
-
线粒体是阿霉素攻击的首要靶细胞器,其功能障碍在整个阿霉素心脏毒性发病网络中处于核心枢纽地位。该环节既是TOP2β损伤的直接下游事件,又通过正反馈机制放大下游所有病理效应。
在线粒体生物合成层面,阿霉素通过抑制线粒体拓扑异构酶(TOP1MT)及关键转录调控因子PGC-1α/β、Nrf1和TFAM的表达,阻断线粒体新生,导致功能性线粒体耗竭[5-6]。在线粒体质量控制层面,阿霉素一方面增加细胞质中p53蛋白的表达[7],促进其与PARKIN的结合,阻断受损线粒体通过PINK1/Parkin途径的选择性自噬清除[8];另一方面抑制去乙酰化酶SIRT1活性,削弱SIRT1/PGC-1α轴的调控功能,加剧受损线粒体的堆积[9]。双重打击之下,功能失调的线粒体在细胞内大量堆积,成为ROS过量生成的主要源头,并导致ATP合成锐减、钙缓冲能力下降,构成下游能量代谢障碍与钙稳态紊乱的结构基础。
-
氧化应激是阿霉素心脏毒性下游效应通路中的核心驱动环节,也是连接线粒体功能障碍与其他病理过程的关键纽带。心脏组织SOD和CAT等抗氧化酶水平较低,抗氧化能力相对薄弱;阿霉素治疗的肿瘤患者体内存在高水平的氧化应激状态[10]。阿霉素可通过以下途径诱导ROS过量生成:①经NADPH氧化酶(NOX2/NOX4)、黄嘌呤氧化酶等转化为半醌,与氧反应生成超氧阴离子;②与铁调节蛋白、铁蛋白结合形成铁-阿霉素复合物,促进线粒体铁过载与脂质过氧化;③结合线粒体内膜心磷脂,干扰电子传递链,降低线粒体膜电位[10]。
大量ROS的产生通过以下途径促进心肌细胞损伤:①脂质过氧化使线粒体膜上不饱和脂肪酸减少,增加膜通透性,降低线粒体膜电位(MMP),触发线粒体通透性转换孔(mPTP)开放[11];②激活p38/JNK/p53 MAPK信号通路,启动促凋亡转录程序[12];③超出Nrf2/HO-1通路的代偿能力,同时NOX家族表达上调,共同导致氧化-抗氧化平衡不可逆地向氧化方向倾斜[13]。
-
铁死亡(Ferroptosis)是近年来受到广泛关注的程序性细胞死亡形式,其核心特征为铁依赖性脂质过氧化累积,且独立于经典凋亡、坏死及自噬途径[14]。在阿霉素心脏毒性中,铁死亡被视为氧化应激的极端表现形式,当活性氧(Reactive Oxygen Species, ROS)生成超过Nrf2/GPX4系统的清除能力时,脂质过氧化反应失控,从而触发铁死亡。
阿霉素通过一个层层递进的机制链条驱动心肌细胞铁死亡:①铁过载是始动环节。阿霉素与铁蛋白形成复合物,促进溶酶体铁释放及线粒体铁摄取,使细胞内游离铁池显著扩张[15];②铁过载通过芬顿反应驱动脂质过氧化。亚铁离子(Fe2+)催化芬顿(Fenton)反应,将过氧化氢(H2O2)转化为高活性的羟基自由基(·OH),后者攻击含多不饱和脂肪酸的膜磷脂,引发脂质过氧化链式反应;③抗氧化防御系统的崩溃使损伤失控。阿霉素下调胱氨酸/谷氨酸反向转运体(cystine/glutamate antiporter, Xc)系统的核心亚基SLC7A11表达,抑制胱氨酸的胞内摄取,导致谷胱甘肽(GSH)合成减少,进而削弱GPX4的抗氧化底物供应;同时阿霉素直接抑制GPX4活性,双重打击下细胞清除脂质过氧化物的能力崩溃[5,16]。
值得注意的是,铁死亡与凋亡、炎症之间存在复杂的交叉调控:脂质过氧化产物(如4-HNE、MDA)可激活NLRP3炎症小体并促进炎症因子释放[13];而GPX4失活亦可增强凋亡信号的敏感性。因此,铁死亡并非孤立事件,而是氧化应激通往终末凋亡与炎症的重要中间节点[14,16]。
-
线粒体功能障碍最直接的后果是心肌能量代谢的全面紊乱。阿霉素削弱质子梯度并降低MMP,导致电子传递链受损,ATP合成锐减[1]。为代偿能量不足,心肌细胞发生代谢重编程:糖酵解关键酶(磷酸果糖激酶、乳酸脱氢酶等)活性上调,而脂肪酸β-氧化关键酶及三羧酸循环关键酶(柠檬酸合酶)活性下调,能量底物利用从高效的氧化磷酸化转向低效的糖酵解[17]。此外,阿霉素还可抑制AMPK信号通路,减少心肌细胞自噬,促进TGF-β/SMAD通路介导的心肌纤维化,形成能量危机与结构重塑的恶性循环[8,15,18]。
-
钙离子主要储存在线粒体和肌浆网中,对维持心肌细胞兴奋-收缩耦合至关重要。阿霉素通过多层面干扰钙稳态:在肌膜层面,其代谢产物多柔比星醇可抑制钠钙交换通道、上调L型钙通道活性,阻碍钙外排并促进内流[19];在肌浆网层面,阿霉素下调SERCA2a表达并激活RyR介导的钙渗漏,导致钙回摄减少而释放增多[20-21]。上述改变引发胞质钙超载,进而促使线粒体大量摄取钙离子,导致线粒体钙超载。钙超载进一步加重线粒体功能障碍(抑制电子传递链、诱导线粒体肿胀),形成线粒体功能障碍与钙稳态紊乱的双向恶性循环。持续的钙稳态失衡还可下调Cx43表达,最终损害心肌收缩与电传导功能[22-23]。
-
上述所有下游效应通路最终汇聚于细胞死亡与炎症反应,构成阿霉素心脏毒性的终末效应。
① 线粒体凋亡:过量ROS诱导线粒体通透性转换孔(mPTP)开放,导致MMP崩解、线粒体肿胀和外膜破裂,释放AIF、ENDOG及细胞色素C等凋亡因子至胞质,激活Caspase级联反应,通过内源性线粒体途径驱动心肌细胞凋亡[1]。此外,持续的内质网应激亦可通过CHOP/Bax途径促进线粒体外膜通透化,进一步加剧凋亡信号的放大。
② 炎症反应:阿霉素可上调TLR4/MyD88/NF-κB通路及NLRP3炎症小体表达,促进IL-1β、IL-18、TNF-α等炎性因子释放,加重心肌损伤[24-26]。此外,阿霉素引起花生四烯酸含量增加,升高PGE2和LTB4等促炎介质水平,进一步放大炎症反应[27]。损伤相关分子模式的释放亦可激活Toll样受体信号通路。
值得注意的是,凋亡与炎症互为因果。凋亡细胞碎片可进一步激活炎症通路,而炎症因子又可加重线粒体损伤,二者形成闭合的正反馈循环,最终导致不可逆的心肌功能丧失。
-
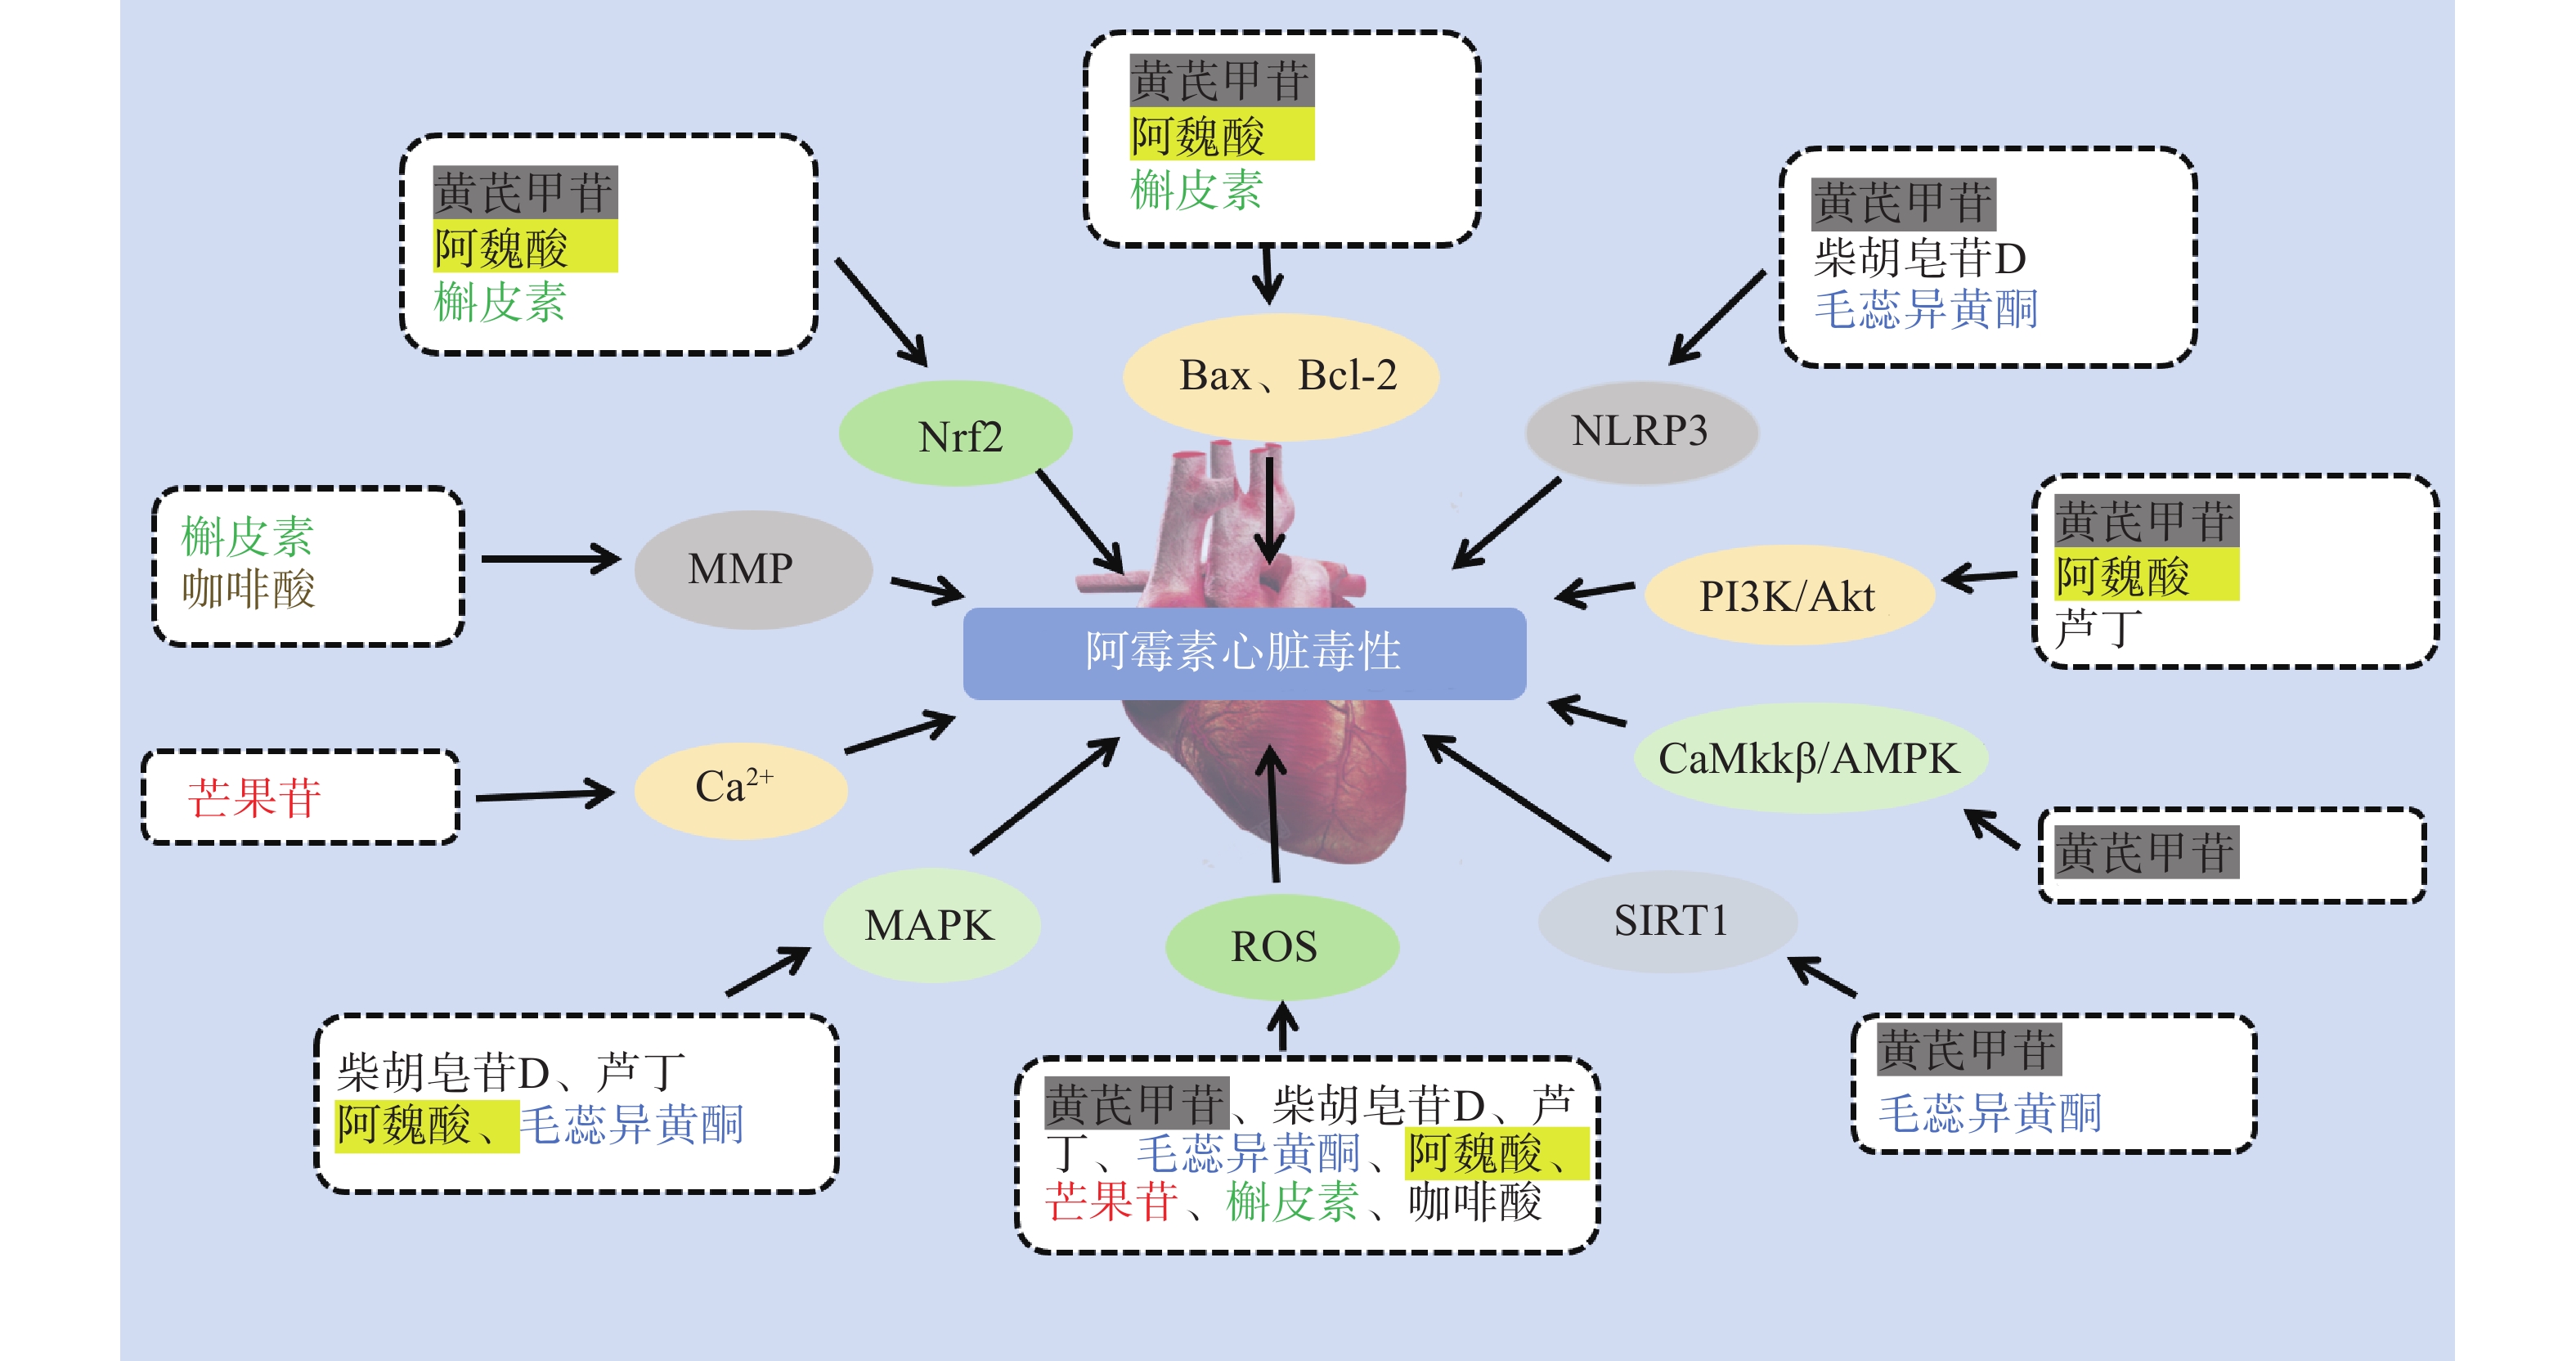
升陷汤全方可通过抑制氧化应激、改善钙稳态、减少心肌酶释放等途径缓解阿霉素诱导的心肌损伤[2]。网络药理学与分子对接研究提示,其核心活性成分(黄芪甲苷、毛蕊异黄酮、柴胡皂苷D、芒果苷、知母皂苷B-II等)可作用于p53、PI3K-Akt、MAPK等通路的关键靶点(CASP3、CDK1、MAPK1等),发挥多维度保护作用[28-29](图2)。多种中药活性单体通过靶向氧化应激、细胞凋亡、炎症、钙稳态、线粒体能量代谢等多条通路,多靶点拮抗多柔比星诱导的心肌损伤,黄芪甲苷Ⅳ具备广谱心脏保护作用。
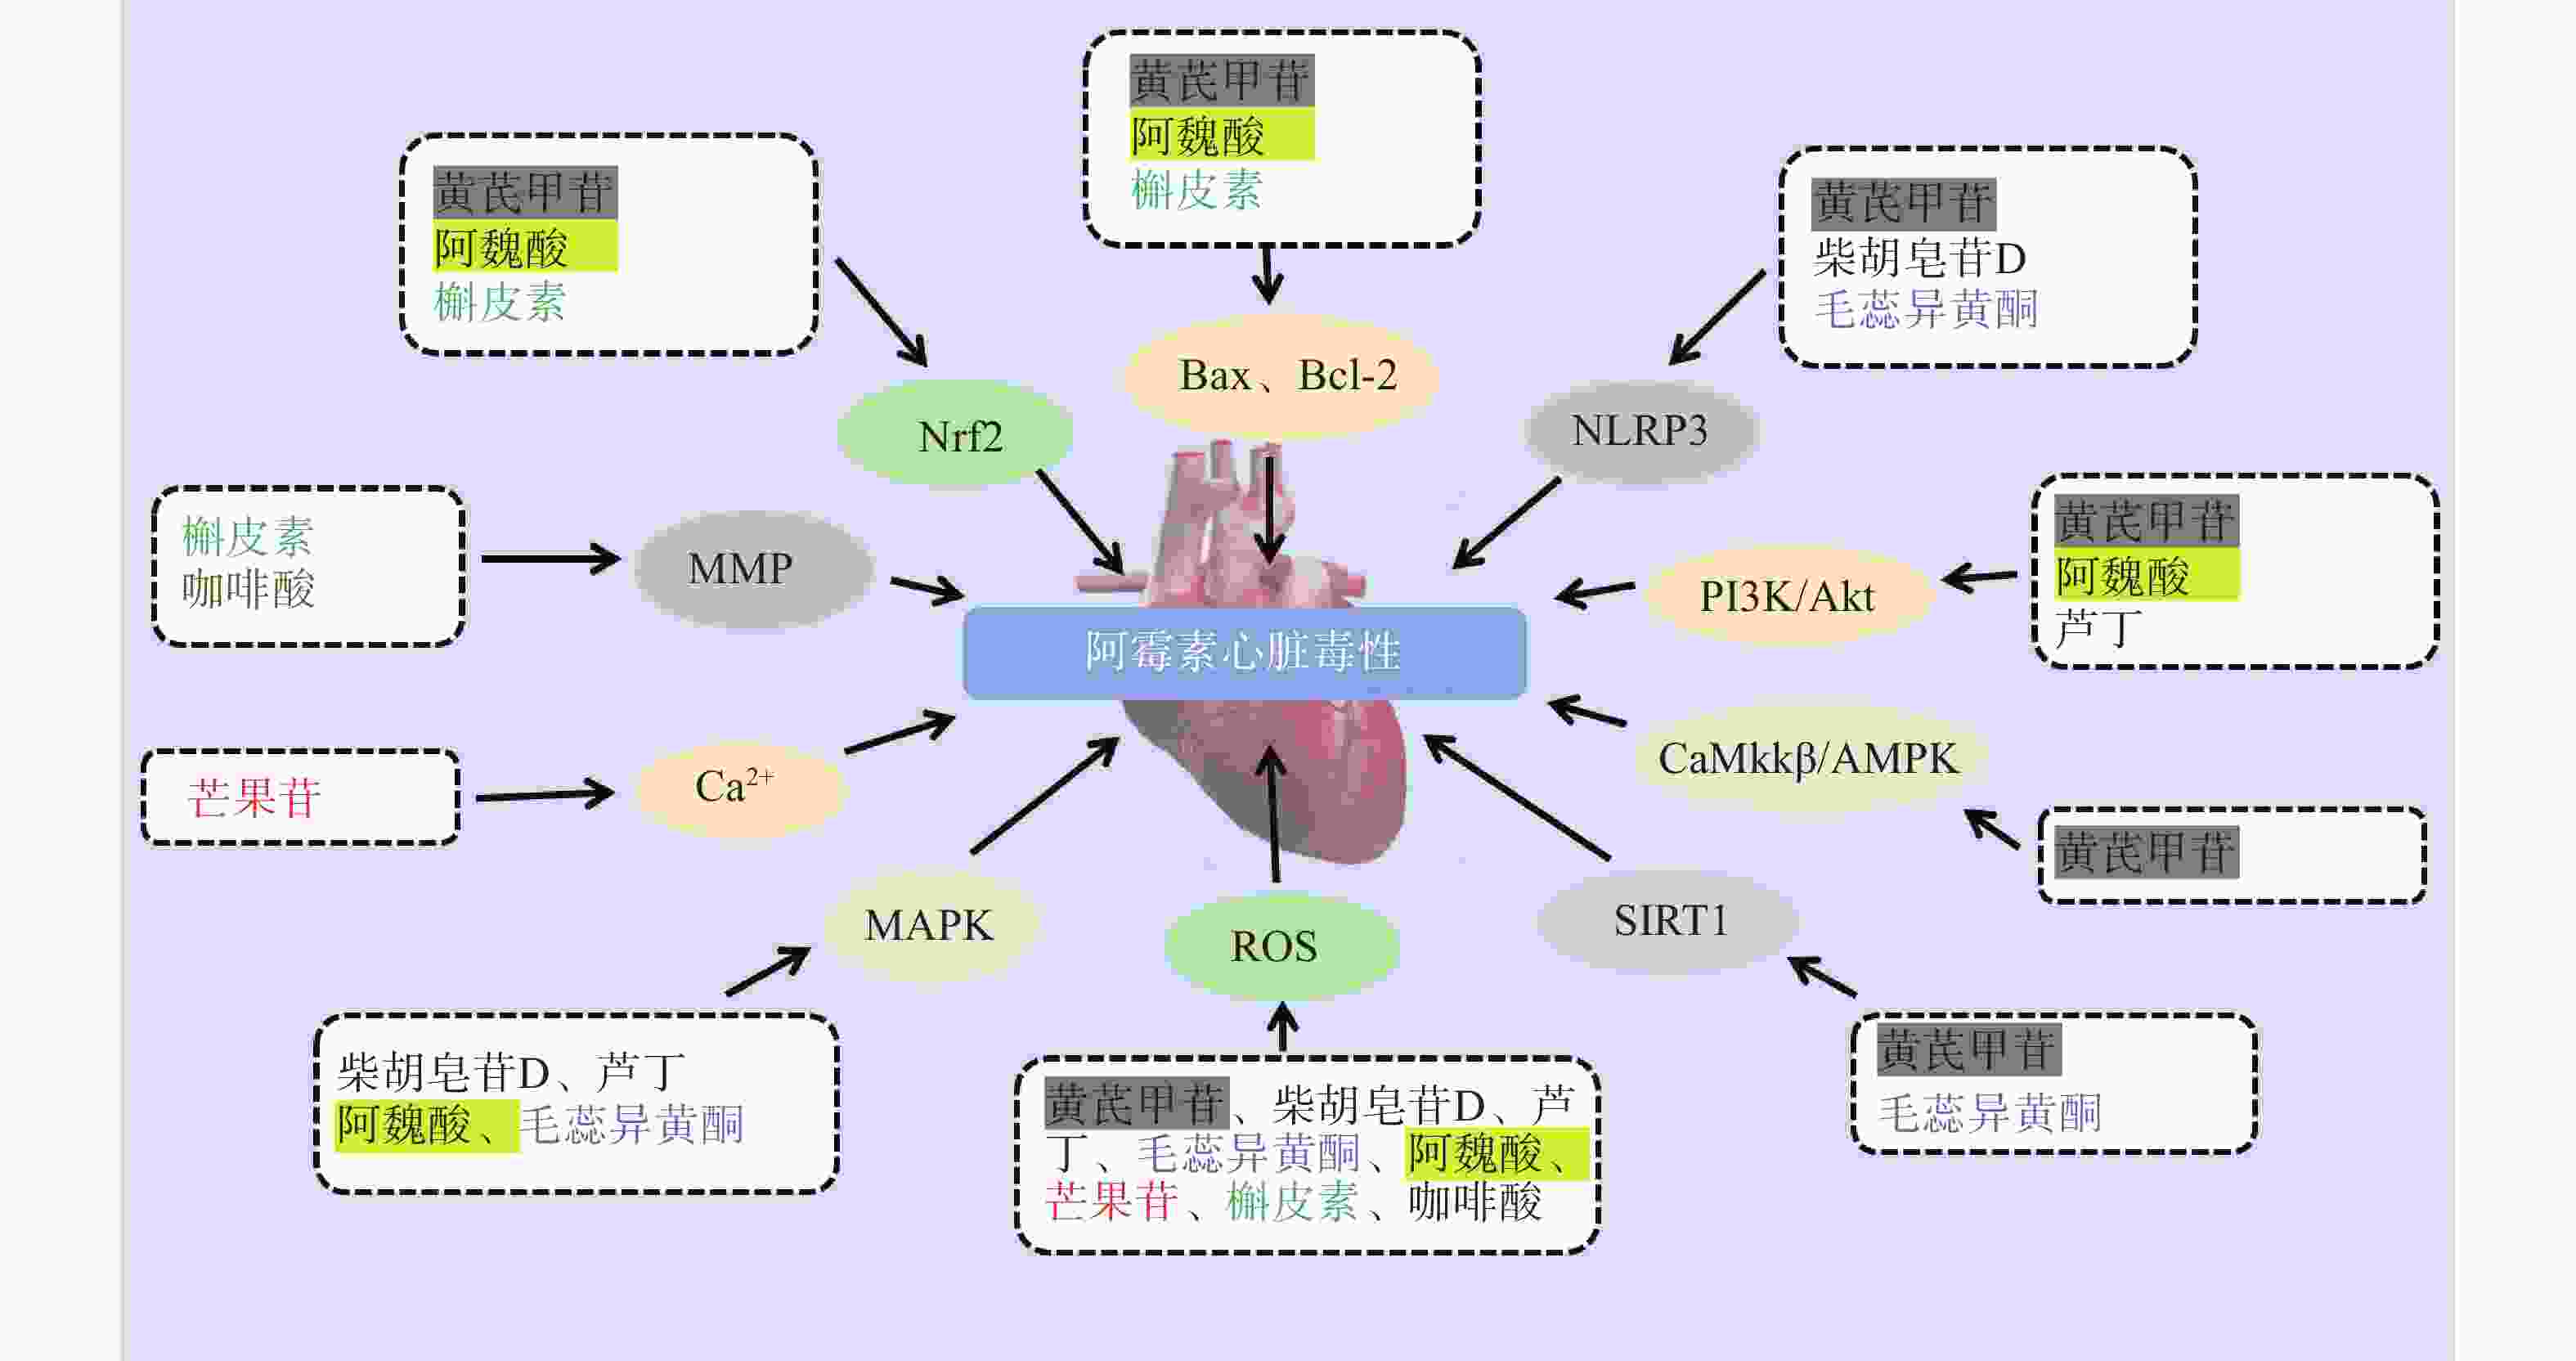
图 2 升陷汤所含活性成分缓解阿霉素导致心脏毒性机制总结
-
升陷汤全方的效应机制不能简单视为各单体成分作用的线性叠加,其配伍协同性是解析复方优势的核心科学问题。中药复方的核心优势在于其“多靶点、多通路”的网络调控特征,多个成分协同作用于疾病网络的多个节点,可能产生“整体大于部分之和”的增效或减毒效应。在升陷汤中,君药黄芪所含的黄芪甲苷和毛蕊异黄酮是发挥心脏保护作用的主要物质基础,而臣药知母中的芒果苷、佐药柴胡中的柴胡皂苷D及使药桔梗中的酚酸类成分则分别作用于不同病理环节,共同构成覆盖阿霉素心脏毒性多重机制的活性成分群[30]。
现有研究已为全方与单体之间的协同关系提供了初步线索。源于黄芪的黄芪甲苷(Astragaloside Ⅳ,AS-IV)强于调控AMPK/mTOR自噬通路和TGF-β/Smad抗纤维化[31-32],而毛蕊异黄酮(Calycosin,CAL)更侧重于NLRP3炎症小体抑制和铁死亡调控[16,33],二者在“自噬-炎症-铁死亡”轴线上可能形成机制互补。知母中的芒果苷可恢复SERCA2a表达、改善钙超载[34],与AS-IV激活PPARα/PGC-1α促进脂肪酸代谢的作用相结合,可在“钙稳态-能量代谢”轴线上产生协同效应[35]。此外,升麻和桔梗所含酚酸类成分(如阿魏酸、咖啡酸)可能通过调节药物代谢酶活性影响黄芪皂苷类成分的生物利用度,但这一推测尚需药代动力学-药效学(PK-PD)联合研究加以验证。
值得注意的是,全方与单体的量效关系并非简单的线性对应。研究提示,升陷汤全方在同等生药剂量下对阿霉素所致心肌损伤的改善效果优于各单味药的简单叠加[2-3],提示复方中其他成分可能通过多靶点整合增强整体疗效,但各成分间的最佳配比关系及量效协同规律仍有待进一步阐明。
-
黄芪甲苷是黄芪的主要活性成分,其在阿霉素心脏毒性中的防护作用研究最为广泛和深入。①抗氧化与抗凋亡:口服40 mg/kg可抑制NOX2/NOX4介导的ROS生成,升高MMP,上调抗凋亡蛋白Bcl-2、下调促凋亡蛋白Bax,减少心肌细胞凋亡[36-37];通过激活钙调蛋白激酶CaMKKβ/AMPK通路抑制过度线粒体自噬[31]。②抗炎与抗纤维化:可上调沉默信息调节因子1(SIRT1),激活Nrf2/HO-1通路抑制NLRP3炎症小体激活[24];激活PI3K/Akt通路,减少CK-MB、LDH和细胞色素C的释放,并恢复SDH和ATP合酶的活性[38];抑制ROS诱导的MerTK的蛋白裂解,从而降低促炎性介质IL-1β和TNF-α水平[39];通过TGF-β/Smad2信号通路缓解心肌纤维化[32]。③代谢调控:通过激活核受体通路PPARα/γ-PGC-1α通路促进脂肪酸代谢,促进巨噬细胞M2极化等多重机制改善能量代谢紊乱[35]。
-
毛蕊异黄酮也是来源于黄芪的主要成分,可通过多个途径发挥防护作用[33]。①减少细胞凋亡:抑制 NLRP3-caspase-1-GSDMD等通路,减少阿霉素诱导的 ROS、线粒体损伤和心肌细胞焦亡[33];②抑制氧化应激:激活Nrf2/SLC7A11/GPX4通路,抑制铁死亡,降低心肌氧化损伤[5,16];③调节自噬:上调自噬相关蛋白Atg7表达,促进受损线粒体清除,改善自噬流障碍[40];④降低炎症反应:调节环氧合酶2(COX2)活性,减少血栓素A2(TXA2)生成、促进前列环素I2(PGI2)合成,减轻炎症反应[41]。
-
除上述两种研究最深入的成分外,升陷汤中其他含量相对较低的成分亦显示出不同程度的阿霉素心脏毒性防护潜力。芦丁主要通过清除ROS及调节PI3K/Akt通路抑制过度自噬与凋亡[42];阿魏酸可激活Nrf2/ARE通路并抑制MAPK/JNK/p38磷酸化[43-44];芒果苷可络合线粒体铁离子、恢复SERCA2a表达,在改善钙超载方面具有独特优势[34,45];柴胡皂苷D通过抑制p38-MAPK通路减少凋亡[46];槲皮素通过激活ERK1/2、PI3K/Akt通路上调Nrf2表达并抑制mPTP开放[40];芒柄花苷可激活SIRT3以缓解内质网应激[47-48];咖啡酸则通过提高Na+-K+-ATP酶和Ca2+-ATP酶活性、稳定MMP发挥保护作用[52],详见表1。
表 1 升陷汤活性成分防治阿霉素心脏毒性的作用机制
单体 造模方式 给药方案 主要检测指标 核心作用机制 参考文献 黄芪甲苷IV 
阿霉素诱导心肌病;阿霉素诱导H9c2细胞凋亡模型 小鼠灌胃:40,80 mg/kg;
大鼠灌胃:20 mg/kg;
H9c2细胞:50 μmol/L↑MMP、NO(保护性信号分子)、Bcl-2、SIRT1;↓NOX2、NOX4、Bax、NLRP3;抑制MerTK裂解 CaMKKβ/AMPK通路;Nrf2/HO-1通路;PI3K/Akt通路;TGF-β/Smad2通路 [24,31-37] 毛蕊异黄酮 
阿霉素诱导H9c2细胞凋亡模型;阿霉素诱导心脏毒性 H9c2细胞:5~40 μmol/L;
小鼠灌胃:20 mg/kg↑MMP、SOD、GSH;↓NLRP3、TXA2 NLRP3/caspase-1/GSDMD通路;SIRT1/NLRP3通路;MAPK通路 [33,40-41,49-50] 芦丁 
阿霉素诱导心力衰竭 小鼠灌胃:100 mg/kg ↓ROS 清除ROS;调节PI3K/Akt通路抑制过度自噬与凋亡;与PIK3R1高亲和力结合 [42] 阿魏酸 
阿霉素诱导H9c2细胞损伤 H9c2细胞:25 μmol/L ↑SOD、Bcl-2;↓ROS、MDA、caspase-3、Bax 激活Nrf2/ARE通路;抑制MAPK/JNK/p38磷酸化;调控PI3K/Akt通路促进自噬 [21,43-45,51] 芒果苷 
阿霉素诱导心脏毒性 大鼠灌胃:60 mg/kg ↑SERCA2a;↓ROS、Ca2+ 络合线粒体铁离子,恢复SERCA2a表达,改善钙超载;上调PI3K/Akt通路减轻氧化损伤 [34,37,45] 柴胡皂苷D 
阿霉素诱导H9c2细胞凋亡模型 H9c2细胞:1 μmol/L ↓MDA、ROS 提高抗氧化酶活性;抑制p38-MAPK通路减少凋亡 [46] 槲皮素 
阿霉素联合环磷酰胺诱导H9c2细胞凋亡 H9c2细胞:1 μmol/L ↑Nrf2、Bcl-2、14-3-3γ;↓ROS、JNK、Bax、mPTP 激活ERK1/2、PI3K/Akt通路,上调Nrf2表达,抑制mPTP开放,减少ROS积累 [40] 芒柄花苷 
阿霉素诱导心脏毒性 大鼠灌胃:30 mg/kg ↑SIRT3 激活SIRT3,缓解内质网应激 [47-48] 咖啡酸 
阿霉素诱导H9c2细胞损伤 H9c2细胞:1 μmol/L ↑MMP、Na+-K+-ATP酶、Ca2+-ATP酶 提高Na+-K+-ATP酶、Ca2+-ATP酶活性,稳定MMP,清除ROS [52] 注:↑表示升高/上调,↓表示降低/下调。NOX2为NADPH氧化酶2,NOX4为NADPH氧化酶4,Bax为Bcl-2相关X蛋白,Bcl-2为B细胞淋巴瘤-2,SIRT1为沉默信息调节因子1,NLRP3为NOD样受体热蛋白结构域相关蛋白3,MerTK为Mer受体酪氨酸激酶,MMP为线粒体膜电位,NO为一氧化氮,SOD为超氧化物歧化酶,GSH为谷胱甘肽,TXA2为血栓素A2,MDA为丙二醛,SERCA2a为肌浆网钙离子ATP酶2a,Nrf2为核因子E2相关因子2,mPTP为线粒体通透性转换孔,caspase-3为半胱天冬酶-3,JNK为c-Jun氨基末端激酶,HO-1为血红素加氧酶-1,14-3-3γ为酪氨酸3-单加氧酶/色氨酸5-单加氧酶激活蛋白γ。 -
线粒体功能障碍是阿霉素心脏毒性的核心驱动因素,其与氧化应激、能量代谢障碍、钙稳态失衡及细胞凋亡等下游效应形成复杂的交互网络。尽管升陷汤多成分已证实具有多靶点保护作用,但在质量控制、物质基础及临床转化方面仍面临挑战。
第一,质量控制体系尚待完善。升陷汤已被列入《古代经典名方目录(第一批)》,质量标志物预测研究初步提出黄芪甲苷、毛蕊异黄酮、芒果苷等潜在质量标志物。但现有质控多限于化学检测,缺乏与药效的直接关联,后续应构建“成分-活性-质量”三位一体的质控标准。
第二,物质基础与协同机制尚不清晰。网络药理学预测升陷汤可通过多靶点多通路作用于心血管疾病,但全方入血成分、药代相互作用及量效关系等关键问题尚不清楚。后续应借助血清药物化学、PK-PD联合分析及拆方研究,明确直接作用物质及最佳配伍比例。
第三,机制研究深度有待加强。现有研究多停留在通路验证层面,后续应运用分子对接、表面等离子体共振等技术验证成分-靶点直接结合,结合单细胞测序及基因敲除动物模型实现精准解析。
第四,临床转化证据匮乏。目前所有研究均为细胞或动物实验,尚无针对阿霉素化疗患者心脏毒性的临床研究报告,其适用人群、干预时机及安全性均有待评估,需优先开展小样本探索性临床研究。
综上,后续研究应以质量控制标准化、物质基础清晰化、机制研究精准化及临床证据确证化为核心方向,推动升陷汤的临床转化与应用。
-
升陷汤所含黄芪甲苷、毛蕊异黄酮、阿魏酸、芒果苷等多种活性成分,可通过抗氧化应激、改善线粒体功能与能量代谢、抗炎、抗凋亡及调控自噬等多重途径发挥心脏保护作用,覆盖阿霉素心脏毒性发病机制的多个关键环节,展现出中药复方“多靶点、多通路”的整体调控特色。本文系统梳理了升陷汤及其活性成分在阿霉素心脏毒性中的分子机制,为该方剂的临床应用及进一步药物开发提供了理论参考。
Research progress on the mechanisms of Shengxian Decoction and its active components against doxorubicin-induced cardiotoxicity
-
摘要: 阿霉素(DOX)是临床应用广泛的蒽环类化疗药物,但其剂量依赖性心脏毒性严重制约了临床应用。阿霉素心脏毒性涉及拓扑异构酶Ⅱβ介导的DNA损伤、线粒体功能障碍、氧化应激、铁死亡及炎症等多重途径,各环节相互关联形成级联放大网络。升陷汤为近代名医张锡纯所创经典方剂,其益气升阳、活血通络之功效可针对阿霉素心脏毒性中关键环节,展现出“多靶点、多通路”的整体调控优势。本文系统综述阿霉素心脏毒性的病理机制网络,以及升陷汤中黄芪甲苷、毛蕊异黄酮、芒果苷等活性成分通过抗氧化应激、抑制铁死亡、改善能量代谢、调控自噬及抗凋亡等多重途径发挥心脏保护作用的分子机制,探讨其配伍协同潜力及临床转化前景,以期为升陷汤的药效物质基础研究与临床定位提供参考。Abstract: Doxorubicin(DOX), a widely used anthracycline chemotherapeutic agent, faces significant clinical limitations due to its severe dose-dependent cardiotoxicity. The pathophysiology of DOX-induced cardiotoxicity involves a complex, interconnected network of signaling pathways, including topoisomerase IIβ-mediated DNA damage, mitochondrial dysfunction, oxidative stress, ferroptosis, and inflammation, which collectively form a self-amplifying cascade. Shengxian Decoction, a classic formulation originally developed by the early 20th-century physician Zhang Xichun, exerts therapeutic effects in “tonifying Qi and elevating Yang”, and activating blood circulation. Notably, these efficacies are directed at core pathological features of DOX cardiotoxicity, like mitochondrial impairment and oxidative injury, positioning the decoction as a promising “multi-target, multi-pathway” holistic intervention. This review systematically delineates the pathological network underlying DOX-induced cardiotoxicity and elucidates the molecular mechanisms by which its key bioactive components, including astragaloside IV, calycosin, and mangiferin, and so on. These mechanisms encompass mitigating oxidative stress, inhibiting ferroptosis, restoring energy metabolism, modulating autophagy, and suppressing apoptosis. Furthermore, we explore the synergistic potential of these components and evaluate the prospects for clinical translation. This synthesis aims to provide insights for future investigations into the pharmacodynamic material basis and precise clinical application of Shengxian Decoction.
-
Key words:
- Shengxian Decoction /
- doxorubicin /
- cardiotoxicity /
- ferroptosis /
- mechanism
-
图 1 阿霉素心脏毒性多靶点损伤调控网络
注:DOX,阿霉素;DOXL,多柔比星醇;TOP2β,DNA拓扑异构酶2β;NADPH,还原型烟酰胺腺嘌呤二核苷酸磷酸;P450,细胞色素P450酶;XO,黄嘌呤氧化酶;ROS,活性氧;TCA,三羧酸循环;ETC,电子传递链;ADP,二磷酸腺苷;ATP,三磷酸腺苷;AIF,凋亡诱导因子;EndoG,核酸内切酶G;TLR4,Toll样受体4;MyD88,髓样分化因子88;NF-kB1,核因子κB1;IFR3,干扰素调节因子3
图 2 升陷汤所含活性成分缓解阿霉素导致心脏毒性机制总结
注:ROS,活性氧;MAPK,丝裂原活化蛋白激酶;MMP,线粒体膜电位;Nrf2,核因子 E2 相关因子2;Bax,Bcl-2相关 X 蛋白;Bcl-2,B 细胞淋巴瘤 - 2;NLRP3,NOD样受体蛋白 3;PI3K,磷脂酰肌醇3 -激酶;Akt,蛋白激酶B;CaMkkβ,钙调蛋白依赖性蛋白激酶激酶 β;AMPK,腺苷酸活化蛋白激酶;SIRT1,沉默信息调节因子1
表 1 升陷汤活性成分防治阿霉素心脏毒性的作用机制
单体 造模方式 给药方案 主要检测指标 核心作用机制 参考文献 黄芪甲苷IV 阿霉素诱导心肌病;阿霉素诱导H9c2细胞凋亡模型 小鼠灌胃:40,80 mg/kg;
大鼠灌胃:20 mg/kg;
H9c2细胞:50 μmol/L↑MMP、NO(保护性信号分子)、Bcl-2、SIRT1;↓NOX2、NOX4、Bax、NLRP3;抑制MerTK裂解 CaMKKβ/AMPK通路;Nrf2/HO-1通路;PI3K/Akt通路;TGF-β/Smad2通路 [24,31-37] 毛蕊异黄酮 阿霉素诱导H9c2细胞凋亡模型;阿霉素诱导心脏毒性 H9c2细胞:5~40 μmol/L;
小鼠灌胃:20 mg/kg↑MMP、SOD、GSH;↓NLRP3、TXA2 NLRP3/caspase-1/GSDMD通路;SIRT1/NLRP3通路;MAPK通路 [33,40-41,49-50] 芦丁 阿霉素诱导心力衰竭 小鼠灌胃:100 mg/kg ↓ROS 清除ROS;调节PI3K/Akt通路抑制过度自噬与凋亡;与PIK3R1高亲和力结合 [42] 阿魏酸 阿霉素诱导H9c2细胞损伤 H9c2细胞:25 μmol/L ↑SOD、Bcl-2;↓ROS、MDA、caspase-3、Bax 激活Nrf2/ARE通路;抑制MAPK/JNK/p38磷酸化;调控PI3K/Akt通路促进自噬 [21,43-45,51] 芒果苷 阿霉素诱导心脏毒性 大鼠灌胃:60 mg/kg ↑SERCA2a;↓ROS、Ca2+ 络合线粒体铁离子,恢复SERCA2a表达,改善钙超载;上调PI3K/Akt通路减轻氧化损伤 [34,37,45] 柴胡皂苷D 阿霉素诱导H9c2细胞凋亡模型 H9c2细胞:1 μmol/L ↓MDA、ROS 提高抗氧化酶活性;抑制p38-MAPK通路减少凋亡 [46] 槲皮素 阿霉素联合环磷酰胺诱导H9c2细胞凋亡 H9c2细胞:1 μmol/L ↑Nrf2、Bcl-2、14-3-3γ;↓ROS、JNK、Bax、mPTP 激活ERK1/2、PI3K/Akt通路,上调Nrf2表达,抑制mPTP开放,减少ROS积累 [40] 芒柄花苷 阿霉素诱导心脏毒性 大鼠灌胃:30 mg/kg ↑SIRT3 激活SIRT3,缓解内质网应激 [47-48] 咖啡酸 阿霉素诱导H9c2细胞损伤 H9c2细胞:1 μmol/L ↑MMP、Na+-K+-ATP酶、Ca2+-ATP酶 提高Na+-K+-ATP酶、Ca2+-ATP酶活性,稳定MMP,清除ROS [52] 注:↑表示升高/上调,↓表示降低/下调。NOX2为NADPH氧化酶2,NOX4为NADPH氧化酶4,Bax为Bcl-2相关X蛋白,Bcl-2为B细胞淋巴瘤-2,SIRT1为沉默信息调节因子1,NLRP3为NOD样受体热蛋白结构域相关蛋白3,MerTK为Mer受体酪氨酸激酶,MMP为线粒体膜电位,NO为一氧化氮,SOD为超氧化物歧化酶,GSH为谷胱甘肽,TXA2为血栓素A2,MDA为丙二醛,SERCA2a为肌浆网钙离子ATP酶2a,Nrf2为核因子E2相关因子2,mPTP为线粒体通透性转换孔,caspase-3为半胱天冬酶-3,JNK为c-Jun氨基末端激酶,HO-1为血红素加氧酶-1,14-3-3γ为酪氨酸3-单加氧酶/色氨酸5-单加氧酶激活蛋白γ。  下载: 导出CSV
-
[1] TETTERTON-KELLNER J, JENSEN B C, NGUYEN J. Navigating cancer therapy induced cardiotoxicity: From pathophysiology to treatment innovations[J]. Adv Drug Deliv Rev, 2024, 211: 115361. [2] 满缓, 张凤, 黄豆豆, 等. 升陷汤及各单味药对阿霉素致心肌细胞损伤的保护作用[J]. 药学实践杂志, 2019, 37(4): 304-308. [3] HUANG C Y, QIU S, FAN X C, et al. Evaluation of the effect of Shengxian Decoction on doxorubicin-induced chronic heart failure model rats and a multicomponent comparative pharmacokinetic study after oral administration in normal and model rats[J]. Biomed Pharmacother, 2021, 144: 112354. [4] CHEN S, CHEN J W, DU W T, et al. PDE10A inactivation prevents doxorubicin-induced cardiotoxicity and tumor growth[J]. Circ Res, 2023, 133(2): 138-157. [5] ZHANG S, LIU X B, BAWA-KHALFE T, et al. Identification of the molecular basis of doxorubicin-induced cardiotoxicity[J]. Nat Med, 2012, 18(11): 1639-1642. [6] YIN J, GUO J B, ZHANG Q, et al. Doxorubicin-induced mitophagy and mitochondrial damage is associated with dysregulation of the PINK1/parkin pathway[J]. Toxicol In Vitro, 2018, 51: 1-10. [7] ZHUANG J, MA W Z, LAGO C U, et al. Metabolic regulation of oxygen and redox homeostasis by p53: Lessons from evolutionary biology?[J]. Free Radic Biol Med, 2012, 53(6): 1279-1285. [8] TAN N N, LUO H W, LI W L, et al. The dual function of autophagy in doxorubicin-induced cardiotoxicity: Mechanism and natural products[J]. Semin Cancer Biol, 2025, 109: 83-90. [9] CAPPETTA D, ESPOSITO G, PIEGARI E, et al. SIRT1 activation attenuates diastolic dysfunction by reducing cardiac fibrosis in a model of anthracycline cardiomyopathy[J]. Int J Cardiol, 2016, 205: 99-110. [10] SHI S X, CHEN Y, LUO Z J, et al. Role of oxidative stress and inflammation-related signaling pathways in doxorubicin-induced cardiomyopathy[J]. Cell Commun Signal, 2023, 21(1): 61. [11] WANG J H, JIANG Y L, ZHU C, et al. Mitochondria-engine with self-regulation to restore degenerated intervertebral disc cells via bioenergetic robust hydrogel design[J]. Bioact Mater, 2024, 40: 1-18. [12] ABDELGHFFAR E A, OBAID W A, ELGAMAL A M, et al. Pea(Pisum sativum)peel extract attenuates DOX-induced oxidative myocardial injury[J]. Biomed Pharmacother, 2021, 143: 112120. [13] HAN H, ZHANG G J, ZHANG X, et al. Nrf2-mediated ferroptosis inhibition: a novel approach for managing inflammatory diseases[J]. Inflammopharmacology, 2024, 32(5): 2961-2986. [14] XIE L H, FEFELOVA N, PAMARTHI S H, et al. Molecular mechanisms of ferroptosis and relevance to cardiovascular disease[J]. Cells, 2022, 11(17): 2726. [15] ICHIKAWA Y, GHANEFAR M, BAYEVA M, et al. Cardiotoxicity of doxorubicin is mediated through mitochondrial iron accumulation[J]. J Clin Invest, 2014, 124(2): 617-630. [16] HAN Q C, SHI J L, YU Y D, et al. Calycosin alleviates ferroptosis and attenuates doxorubicin-induced myocardial injury via the Nrf2/SLC7A11/GPX4 signaling pathway[J]. Front Pharmacol, 2024, 15: 1497733. [17] RIBEIRO A P D, PEREIRA A G, TODO M C, et al. Pera orange (Citrus sinensis) and Moro orange (Citrus sinensis (L.)Osbeck) juices attenuate left ventricular dysfunction and oxidative stress and improve myocardial energy metabolism in acute doxorubicin-induced cardiotoxicity in rats[J]. Nutrition, 2021, 91-92: 111350. [18] KHALIL H, KANISICAK O, PRASAD V, et al. Fibroblast-specific TGF-β-Smad2/3 signaling underlies cardiac fibrosis[J]. J Clin Invest, 2017, 127(10): 3770-3783. [19] OCTAVIA Y, TOCCHETTI C G, GABRIELSON K L, et al. Doxorubicin-induced cardiomyopathy: from molecular mechanisms to therapeutic strategies[J]. J Mol Cell Cardiol, 2012, 52(6): 1213-1225. [20] HANNA A D, LAM A, THAM S, et al. Adverse effects of doxorubicin and its metabolic product on cardiac RyR2 and SERCA2A[J]. Mol Pharmacol, 2014, 86(4): 438-449. [21] TSCHESCHNER H, MEINHARDT E, SCHLEGEL P, et al. CaMKII activation participates in doxorubicin cardiotoxicity and is attenuated by moderate GRP78 overexpression[J]. PLoS One, 2019, 14(4): e0215992. [22] SHI H, YANG S A, BAI L Y, et al. Mechanism of myocardial damage induced by doxorubicin via calumenin-regulated mitochondrial dynamics and the calcium-Cx43 pathway[J]. World J Cardiol, 2025, 17(5): 104839. [23] LIU X F, TIAN R M, TAO H L, et al. The cardioprotective potentials and the involved mechanisms of phenolic acids in drug-induced cardiotoxicity[J]. Eur J Pharmacol, 2022, 936: 175362. [24] FITZGERALD K A, KAGAN J C. Toll-like receptors and the control of immunity[J]. Cell, 2020, 180(6): 1044-1066. [25] WANG Q, WANG B L, TIAN X X, et al. Cardamonin protects against doxorubicin-induced cardiotoxicity in mice by restraining oxidative stress and inflammation associated with Nrf2 signaling[J]. Biomed Pharmacother, 2020, 122: 109547. [26] CHEN X H, TIAN C, ZHANG Z Q, et al. Astragaloside IV inhibits NLRP3 inflammasome-mediated pyroptosis via activation of nrf-2/HO-1 signaling pathway and protects against doxorubicin-induced cardiac dysfunction[J]. Front Biosci, 2023, 28(3): 45. [27] SZTOLSZTENER K, HODUN K, CHABOWSKI A. α-lipoic acid ameliorates inflammation state and oxidative stress by reducing the content of bioactive lipid derivatives in the left ventricle of rats fed a high-fat diet[J]. Biochim Biophys Acta BBA Mol Basis Dis, 2022, 1868(9): 166440. [28] 周浩明, 乐世俊, 刘文娟, 等. 经典名方升陷汤的研究进展及质量标志物的预测分析[J]. 中国现代中药, 2024, 26(3): 550-565. [29] JIAO G Y, WANG Y J, SONG Y, et al. Combination of ultra-performance liquid chromatography-quadrupole time-of-flight mass spectrometry and network pharmacology to reveal the key effective compounds and mechanism of Shengxian decoction for ameliorating doxorubicin cardiotoxicity[J]. J Sep Sci, 2024, 47(9-10): e2300867. [30] 孙美, 张凤, 范香成, 等. 基于多指标成分测定的正交试验法优选升陷汤提取工艺[J]. 中华中医药杂志, 2022, 37(12): 7423-7427. [31] HU Y C, YU J Z, HE W X, et al. Astragaloside IV intervenes multi-regulatory cell death forms against doxorubicin-induced cardiotoxicity by regulating AMPKα2 pathway[J]. Int Immunopharmacol, 2024, 142: 113078. [32] 王巧巧, 李响响, 田萍, 等. 黄芪甲苷对心力衰竭大鼠心肌纤维化及TGF-β/Smad2信号通路的影响[J]. 实用中医内科杂志, 2025, 39(7): 141-143,后插8. [33] WAN S T, QI J Y, XIA Y, et al. Cardiac Slc25a49-mediated energy reprogramming governs doxorubicin-induced cardiomyopathy through the G6P–AP-1–sln axis[J]. Adv Sci, 2025, 12(26): 2502163. [34] AGUSTINI F D, AROZAL W, LOUISA M, et al. Cardioprotection mechanism of mangiferin on doxorubicin-induced rats: Focus on intracellular calcium regulation[J]. Pharm Biol, 2016, 54(7): 1289-1297. [35] YU X Y, HAN Z D, GUO L L, et al. The novel combination of astragaloside IV and formononetin protects from doxorubicin-induced cardiomyopathy by enhancing fatty acid metabolism[J]. Chin J Nat Med, 2025, 23(10): 1171-1182. [36] LIN J M, FANG L J, LI H, et al. Astragaloside IV alleviates doxorubicin induced cardiomyopathy by inhibiting NADPH oxidase derived oxidative stress[J]. Eur J Pharmacol, 2019, 859: 172490. [37] 沈丽娟, 陆曙, 蔺莉霞, 等. 黄芪甲苷对阿霉素诱导大鼠心肌细胞凋亡的抑制作用[J]. 江苏医药, 2017, 43(15): 1057-1061. [38] JIA Y Y, ZUO D Y, LI Z Q, et al. Astragaloside IV inhibits doxorubicin-induced cardiomyocyte apoptosis mediated by mitochondrial apoptotic pathway via activating the PI3K/Akt pathway[J]. Chem Pharm Bull, 2014, 62(1): 45-53. [39] 王雪丽, 陈亚男, 黄厚芹, 等. 黄芪甲苷通过抑制MerTK缓解阿霉素引起的心脏毒性[J]. 蚌埠医学院学报, 2021(6): 717-721. [40] SHANG W, LI X H, ZENG L H, et al. Mechanistic insights into flavonoid subclasses as cardioprotective agents against doxorubicin-induced cardiotoxicity: a comprehensive review[J]. Drug Des Dev Ther, 2025, 19: 5553-5596. [41] 杨秀娟, 田一虹, 杨志军, 等. 基于网络药理学和分子对接的红芪活性成分抗阿霉素心肌毒性的分子机制研究[J]. 中国药物化学杂志, 2021, 31(3): 209-219. [42] LELE K A, PATIL P P, KAKADE S V, et al. Targeting cardiotoxicity: the potential of Annona squamosa L. in doxorubicin therapy[J]. Silico Pharmacol, 2025, 13(1): 47. [43] YARMOHAMMADI F, REZAEE R, KARIMI G. Natural compounds against doxorubicin-induced cardiotoxicity: a review on the involvement of Nrf2/ARE signaling pathway[J]. Phytother Res, 2021, 35(3): 1163-1175. [44] SAHU R, DUA T K, DAS S, et al. Wheat phenolics suppress doxorubicin-induced cardiotoxicity via inhibition of oxidative stress, MAP kinase activation, NF-κB pathway, PI3K/Akt/mTOR impairment, and cardiac apoptosis[J]. Food Chem Toxicol, 2019, 125: 503-519. [45] ISMAIL M B, RAJENDRAN P, ABUZAHRA H M, et al. Mangiferin inhibits apoptosis in doxorubicin-induced vascular endothelial cells via the Nrf2 signaling pathway[J]. Int J Mol Sci, 2021, 22(8): 4259. [46] ZHANG Y J, WU S S, CHEN X M, et al. Saikosaponin D alleviates DOX-induced cardiac injury in vivo and in vitro[J]. J Cardiovasc Pharmacol, 2022, 79(4): 558-567. [47] ZHANG H L, WENG J F, SUN S M, et al. Ononin alleviates endoplasmic reticulum stress in doxorubicin-induced cardiotoxicity by activating SIRT3[J]. Toxicol Appl Pharmacol, 2022, 452: 116179. [48] GONG G W, GANESAN K, XIONG Q P, et al. Anti-invasive and anti-migratory effects of ononin on human osteosarcoma cells by limiting the MMP2/9 and EGFR-Erk1/2 pathway[J]. Cancers, 2023, 15(3): 758. [49] 李文标, 徐缘博, 沈隽吉, 等. 基于网络药理学和分子对接探讨炙黄芪拮抗阿霉素心肌损伤的机制研究[J]. 中药药理与临床, 2022, 38(1): 110-118. [50] ZHANG L, FAN C D, JIAO H C, et al. Calycosin alleviates doxorubicin-induced cardiotoxicity and pyroptosis by inhibiting NLRP3 inflammasome activation[J]. Oxid Med Cell Longev, 2022, 2022: 1733834. [51] 吴枝娟, 余靖, 王瑞幸, 等. 阿魏酸预处理对阿霉素诱导H9 c2心肌细胞损伤的保护作用[J]. 中国药理学通报, 2014, 30(8): 1059-1065. [52] 唐炜, 叶鹏林, 刘坤, 等. 咖啡酸对阿霉素心肌细胞损伤的保护作用及机制研究[J]. 安徽医科大学学报, 2022, 57(3): 402-407. -

 点击查看大图
图(2) / 表(1)
计量
- 文章访问数: 127
- HTML全文浏览量: 66
- PDF下载量: 0
- 被引次数: 0
