

 下载:

-
高脂血症是一种常见的以血液中总胆固醇(TC)、甘油三酯(TG)和低密度脂蛋白胆固醇(LDL-C)水平升高,高密度脂蛋白胆固醇(HDL-C)水平下降为特征的代谢性疾病[1]。高脂血症与多种慢性疾病如心血管疾病、糖尿病及脂肪肝等发病风险密切相关,近年来其发病率显著增长,导致全球人群的发病率和死亡率增加[2-3]。高脂血症的病理机制复杂,与炎症反应与氧化应激密切相关,脂质代谢紊乱可通过激活NF-κB通路促进TNF-α、IL-6等促炎因子的释放,同时慢性炎症状态又可进一步加重胰岛素抵抗和脂质沉积[4.5]。尽管高脂血症的治疗方法多样,如调整生活方式、药物治疗及手术干预等,但现有治疗方式存在疗效缓慢、副作用多及患者依从性差等问题[6-9]。因此,开发更为有效的辅助治疗药物以提升血脂异常患者的整体疗效和生活质量,已成为亟待解决的课题。
近年来中医药的研究与应用被广泛关注,其具有多成分、多途径和多靶点的特性,且副作用少,在慢病领域的预防和治疗中发挥重要作用。大量证据表明某些天然化合物对高脂血症相关疾病具有治疗潜力,许多传统中药中的天然产品、水果和蔬菜可以通过多种途径调节脂质[10-11]。沙棘属于胡颓子科,营养成分丰富,被广泛用于药品及保健食品,原产于中国且部分亚种仅在中国分布[12]。从沙棘中提取的各种成分,例如果油、种子油及其叶部提取物等,已被证明具备抗氧化作用、抗糖尿病及降血脂等多种作用[13-14]。近年来,沙棘在调节脂质代谢方面的研究取得了重要进展。临床研究表明,高胆固醇血症女性每日饮用沙棘汁8周后,LDL-C水平显著降低、HDL-C水平显著升高[15];随机对照试验证实沙棘果泥对高胆固醇血症患者具有抗炎和降压作用[16]。尽管沙棘的降血脂活性已被多项研究证实,但其药效物质基础及作用机制尚未被系统阐明,限制了其在临床的进一步应用。
本研究旨在通过网络药理学筛选和预测高脂血症治疗中沙棘活性成分的潜在靶点及信号通路,并通过高脂血症动物模型进一步的验证,以阐明沙棘治疗高脂血症的具体机制,为沙棘的进一步研究开发及高脂血症潜在治疗方法的挖掘奠定基础。
-
高脂饲料(配方:60%基础饲料、20%猪油、10%蔗糖、5%蛋黄粉、5%胆固醇,购自小鼠优泰(北京)生物科技有限公司);沙棘饮片(批号:
231121 ,宁夏康杨中药材科技有限公司);阿托伐他汀(批号:KC2H51164,齐鲁制药集团有限公司);苏木精染色试剂盒(批号:C0107)、油红 O染色试剂盒(批号: C0157S)购自Beyotime公司;总胆固醇(TC)检测试剂盒(批号:BL1845A,兰杰科公司);甘油三酯(TG)检测试剂盒(批号:S0219S)、低密度脂蛋白胆固醇(LDL)检测试剂盒(批号:S0213M)、高密度脂蛋白胆固醇(HDL)检测试剂盒(批号:S0213M)购自碧云天公司;肿瘤坏死因子-α(TNF-α)检测试剂盒(批号:EK382HS)、白细胞介素-6(IL-6)检测试剂盒(批号:EK306)、白细胞介素-2(IL-2)检测试剂盒(批号:EK302)购自联科生物;蛋白激酶B(AKT,批号:ab283852)、磷酸化蛋白激酶B(p-AKT,批号:ab38449)、丝裂原活化蛋白激酶14(p38,批号:ab170099)、磷酸化丝裂原活化蛋白激酶 14(p-p38,批号:ab4822)、β-肌动蛋白(β-actin)抗体、辣根过氧化物酶标记山羊抗兔免疫球蛋白G(HRP-goat anti-rabbit IgG)抗体(批号:ab150077)购自Abcam生物科技公司;ECL 化学发光液(批号:SQ201,Epizyme)。 -
SLX-1024X离心机、PM-24组织切片机、LG-FS8数字切片扫描仪(Servicebio);酶标检测仪(BioTek,Epoch);Chemray 240全自动生化分析仪、Chemray 800全自动生化分析仪(深圳雷杜生命科技);DK-8B电热恒温水槽(精宏);化学发光成像系统(Bio-Rad,ChemiDoc XRS+)。
-
基于中药系统药理学分析平台(TCMSP,
http://tcmspw.com/tcmsp.php )筛选沙棘生物活性组分,设定口服生物利用度(OB)>30%及类药性指数(DL)≥0.18为标准,通过PubChem数据库获取SMILES结构,运用Swiss ADME平台进行药动学评估。依托Uniprot数据库将靶点映射至基因名,使用Cytoscape 3.9.1软件构建"成分-靶点"网络并计算degree值,识别关键活性成分。 -
基于OMIM(
https://omim.org/ )、GeneCards(https://www.genecards.org/ )和Disgenet(https://www.disgenet . org/)数据库系统检索高脂血症相关靶点,经VLOOKUP函数交叉比对去除冗余后,借助UniProt数据库(https://www.uniprot.org/ )进行标准化验证。 -
将沙棘活性成分靶点与高脂血症相关靶点导入Venny 2.0.2平台绘制韦恩图,取两者交集获得共同靶点,作为沙棘降血脂作用的潜在关键靶点。
-
通过整合筛选获得的药物与疾病共同作用靶点,利用STRING数据库构建了限定于人类(Homo sapiens)的蛋白质互作网络(PPI),所有参数均保持系统默认设置。随后,采用Cytoscape 3.9.1软件平台中的"Network Analyzer"插件对该网络进行拓扑学特征分析,最终生成了包含药物活性成分与关键靶点的相互作用网络图谱。
-
采用功能注释生物信息学分析平台DAVID数据库(
https://david.ncifcrf.gov/ )对药物-疾病共同靶点进行系统分析。在限定物种为人源(homo sapiens)的条件下,分别开展GO功能注释和KEGG通路富集研究,以阐明其核心生物学过程与代谢调控网络。所得富集分析结果通过Omicshare在线平台(http://www.omicshare.com/ )实现可视化呈现,生成专业级气泡图。将提取到的沙棘活性成分、共同靶点以及KEGG信号通路的数据导入至Cytoscape3.9.1软件中,以构建一个包含沙棘成分、作用靶点及其相关信号通路的网络图。 -
为进一步探究沙棘潜在活性成分与核心靶点蛋白的结合亲和力的强弱,从构建的“活性成分-靶点-疾病”网络中筛选沙棘潜在活性成分作为小分子配体,以 STRING平台筛选出的核心靶点作为蛋白受体,选取排名靠前的活性成分及靶点进行分子对接验证。首先从PubChem网站里下载核心活性成分结构。其次,从Uniprot数据库(
https://www.uniprot.org/ )及PDB数据库(https://www.rcsb.org/ )获取靶点蛋白的晶体结构。分别使用Chem3D 22.0.0及PyMOL 3.0.3软件对成分结构及蛋白结构进行预处理。对接过程采用AutoDock Vina 1.5.6软件进行,复合物构象可视化通过PyMOL 3.0.3进行。 -
选取27只SPF级雄性C57BL/6小鼠,体重20 g,购自杭州子源实验动物科技有限公司,适应性饲养1周(温度22~25℃,相对湿度50%~60%,12 h昼夜周期)。本动物实验已获浙江省实验动物中心实验动物福利伦理委员会批准(批准号:ZJCLA-IACUC-N20260406021B)。其中21只小鼠高脂饲料喂养12周建立高脂血症模型,随机抽取3只小鼠处死,肝组织HE染色示肝细胞脂肪变性(≥50%肝细胞可见脂滴)伴轻度炎症浸润提示造模成功。将造模成功小鼠随机分为模型组、他汀组及沙棘组,每组6只,另外预留6只未造模小鼠作为空白组。每组小鼠均通过灌胃给药,共8周,其中他汀组每天给药阿托伐他汀10 mg/kg[17];沙棘组根据《中国药典》2020年版一部规定的沙棘成人临床日用量3~10 g/d(取中间剂量6 g/d),按体表面积法估算小鼠等效剂量(成人标准体重取60 kg),每天给药1.2 g/kg[18];空白组和模型组均使用等体积生理盐水。
-
小鼠肝脏用4%多聚甲醛固定24小时,冰冻切片后用60%异丙醇润洗,现配油红O工作液并在37℃及避光条件下染色15 min,再用60%异丙醇快速分化至背景无色,水洗后用苏木精复染核,再用流水蓝化,最后甘油明胶水性封片,在显微镜下观察脂滴。
-
从小鼠眼眶取血,室温下放置2小时后,在4℃下,
3000 r/min,离心10 min,取上清液保存在−80°C的冰箱中备用,根据ELISA检测试剂盒说明书分别检测TNF-α、IL-6和IL-2。 -
取肝组织0.2 g,加入2 ml RIPA裂解液(含1%蛋白酶抑制剂和1%磷酸酶抑制剂),冰上匀浆,4℃、
12000 r/min离心30 min,收集上清液。BCA法测定蛋白浓度。将蛋白样本与5×SDS上样缓冲液按4∶1比例混合,100℃煮沸5分钟变性,冰上冷却备用。制备10% SDS-PAGE凝胶,每孔加入30 μg 蛋白样本,80V恒压电泳30 min,随后120 V恒压电泳90 min。电泳结束后,250 mA恒流转印蛋白至PVDF膜60 min。转印后,将PVDF膜置于5%脱脂牛奶封闭液中,室温摇床封闭2 h。加入一抗(AKT、p-AKT、p38、p-p38抗体、β-actin,1∶2000),4℃摇床孵育过夜。TBST洗涤3次,每次10 min,加入HRP标记的二抗(1∶5000 ),室温摇床孵育1 h,TBST洗涤后,加入ECL化学发光液,采用化学发光成像系统收集蛋白条带图像。 -
统计分析使用SPSS软件版本20.0进行。除非另有说明,所有数据均以均值±均值标准误(SEM)形式呈现。组间比较用单因素方差分析,以P<0.05为差异具有统计学意义。
-
通过TCMSP数据库系统初步筛选出沙棘33种潜在活性化学成分,最终确定28种具有明确作用靶点的活性成分,其化学结构类型包括黄酮类化合物、萜类衍生物及甾体类物质等(表1)。进一步利用Swiss Target Prediction生物信息学平台进行预测分析,共获得271个与沙棘活性成分相关的潜在作用靶点。
表 1 沙棘活性成分表
编号 成分 活性成分 OB(%) DL 1 MOL001004 天竺葵素 37.99 0.21 2 MOL010212 14甲基α-谷甾醇 43.49 0.78 3 MOL010227 角黄素 41.59 0.56 4 MOL010228 类胡萝卜素 40.76 0.55 5 MOL010230 ST5330591 48.08 0.84 6 MOL010234 δ-胡萝卜素 31.8 0.55 7 MOL010240 麦角甾-7-en-3-β-醇 38.76 0.83 8 MOL010241 麦角甾醇 35.41 0.71 9 MOL001979 隐甾醇 42.12 0.75 10 MOL010283 ZINC03831331 47.6 0.65 11 MOL001420 β-植物甾醇 38 0.76 12 MOL001494 亚油酸乙酯 42 0.19 13 MOL001510 22,23-二氢菜籽甾醇 37.58 0.71 14 MOL002268 大黄酸 47.07 0.28 15 MOL002588 齿孔醇 42.37 0.77 16 MOL002773 β-胡萝卜素 37.18 0.58 17 MOL000354 异鼠李素 49.6 0.31 18 MOL000358 β-谷甾醇 36.91 0.75 19 MOL000359 谷甾醇 36.91 0.75 20 MOL000422 山柰酚 41.88 0.24 21 MOL000433 叶酸 68.96 0.71 22 MOL000449 豆甾醇 43.83 0.76 23 MOL000492 (+)-儿茶素 54.83 0.24 24 MOL005100 橙皮素 47.74 0.27 25 MOL010211 14,15-二甲基-α-植物甾醇 43.14 0.78 26 MOL000073 (+)-表儿茶素 48.96 0.24 27 MOL000953 胆甾醇 37.87 0.68 28 MOL000098 槲皮素 46.43 0.28 -
利用DisGeNET、GeneCards及OMIM三大数据库检索高脂血症相关致病基因。其中,DisGeNET与GeneCards分别以其中位数评分为阈值(DisGeNET≥0.02,GeneCards>0.959)筛选高关联基因;OMIM收录条目因经实验验证,全部纳入。合并三库候选基因并去除重复后,共获得高脂血症相关靶点700个。
-
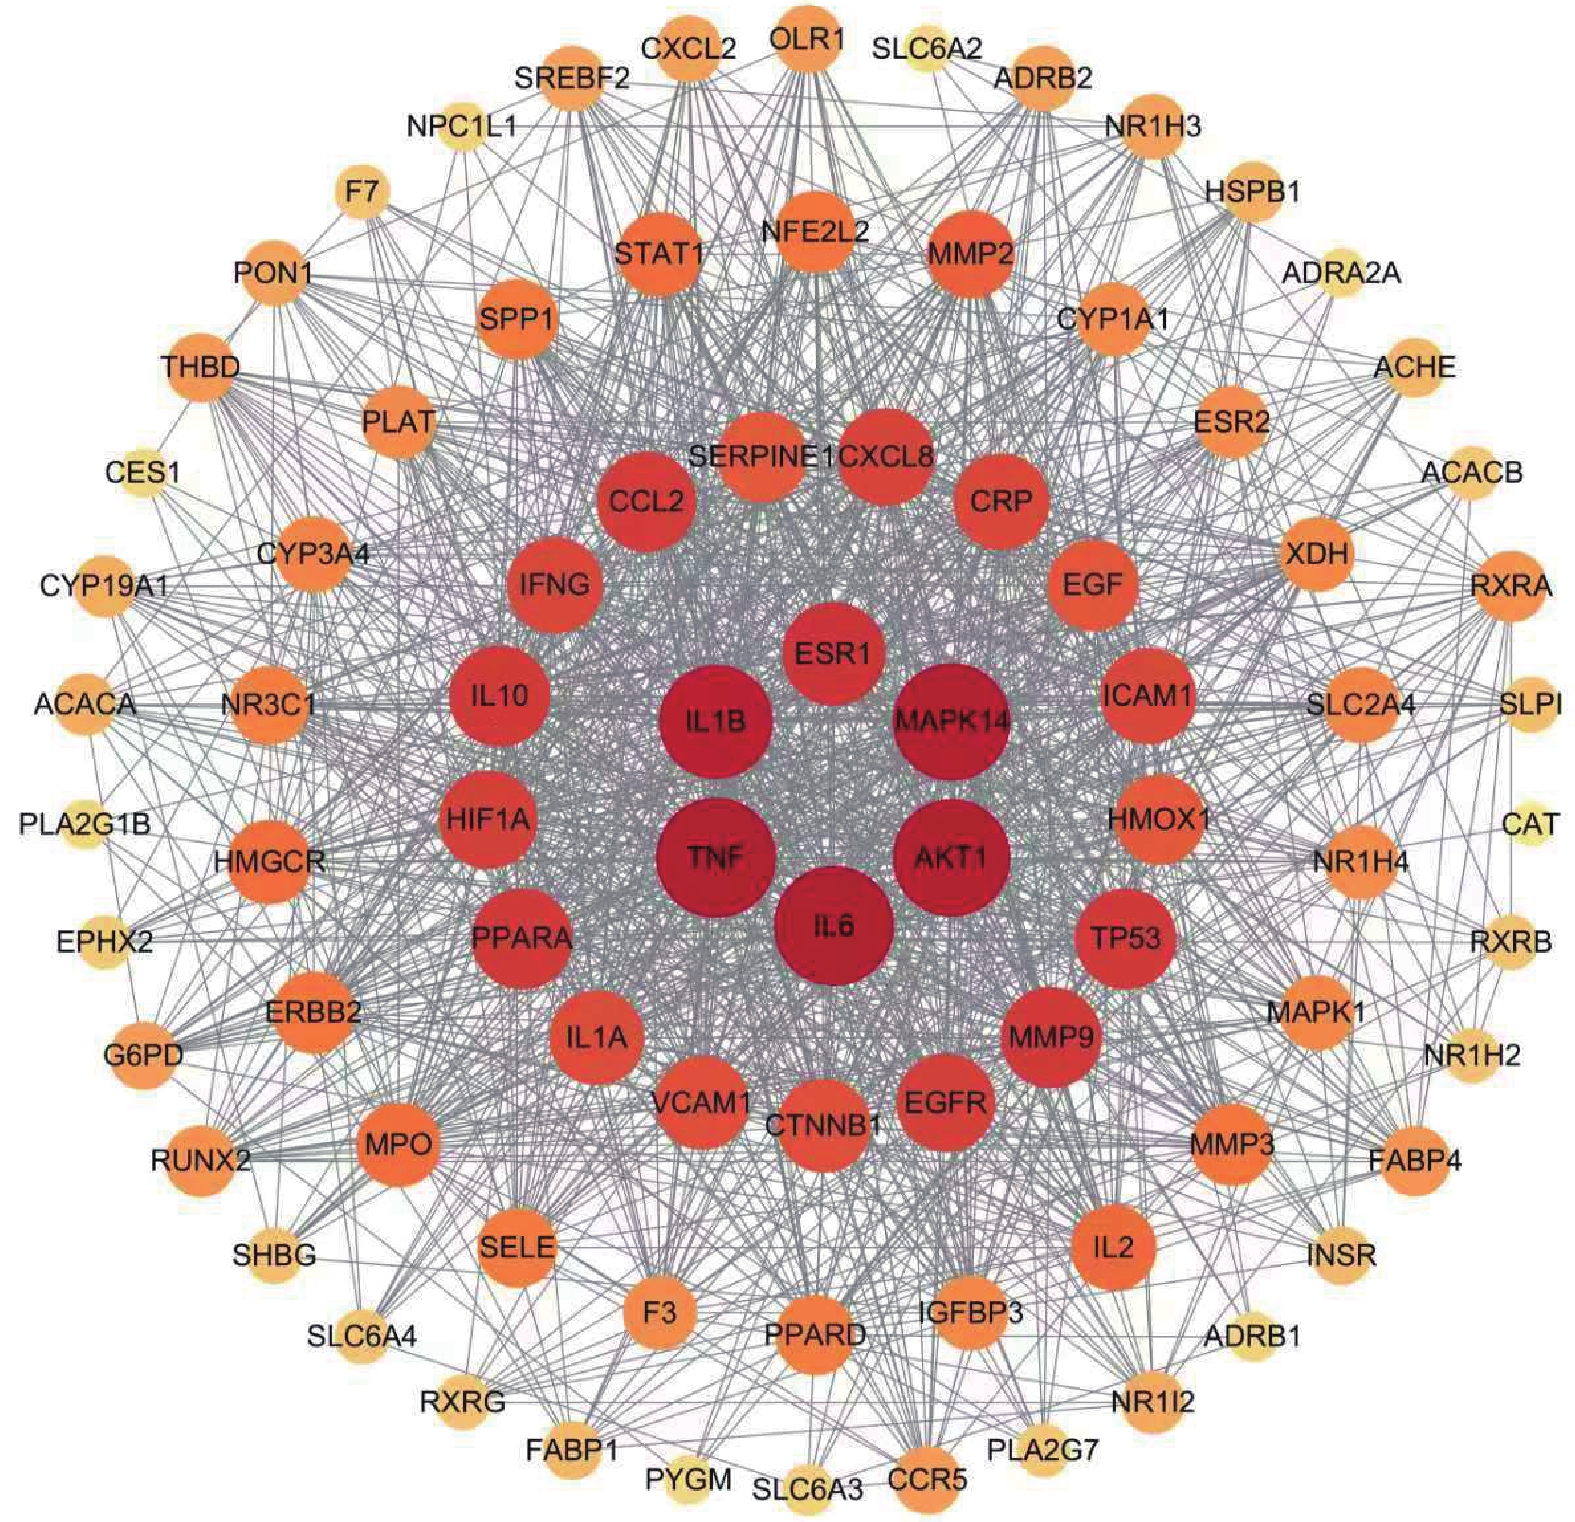
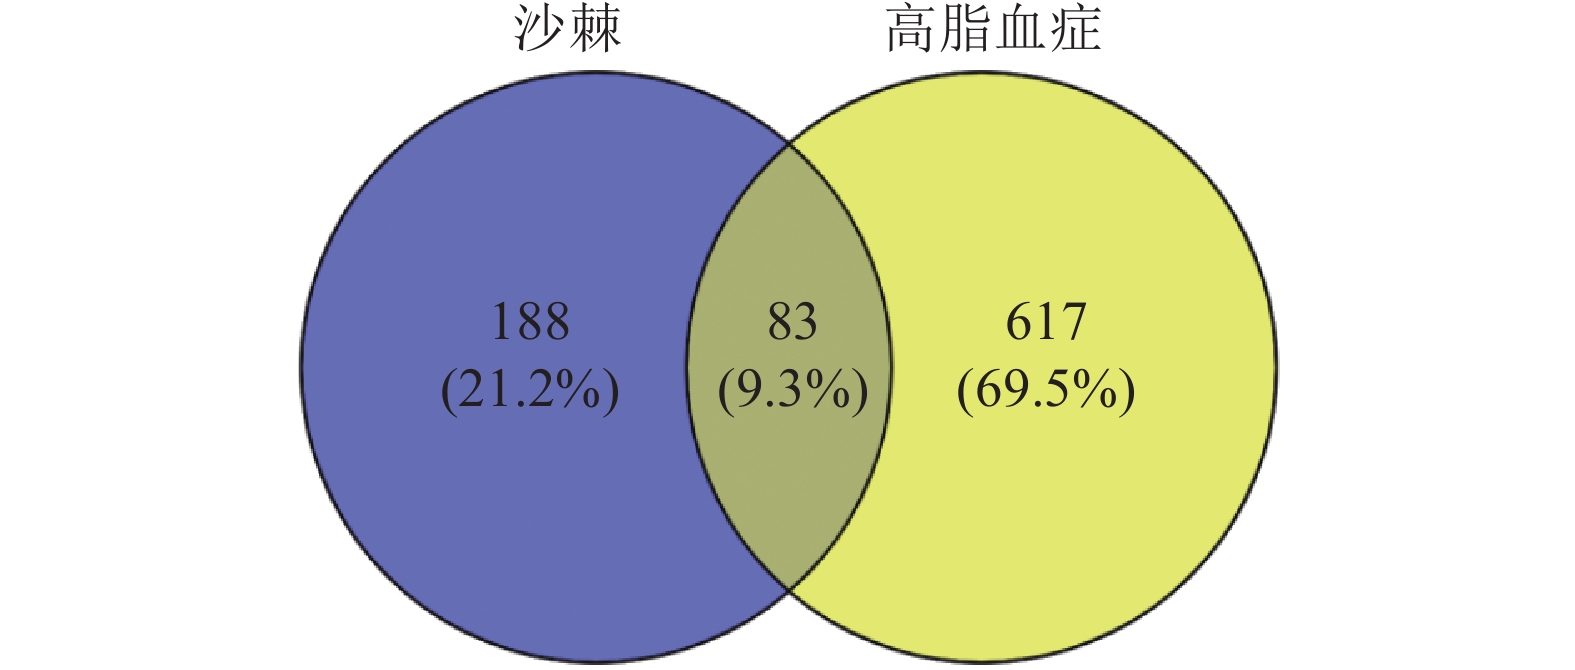
将沙棘中的活性成分靶点与疾病相关靶点导入Venny2.1平台,获得两者交集靶点83个,即为沙棘治疗高脂血症的潜在作用靶点(图1)。将潜在靶点导入到STRING数据库中(
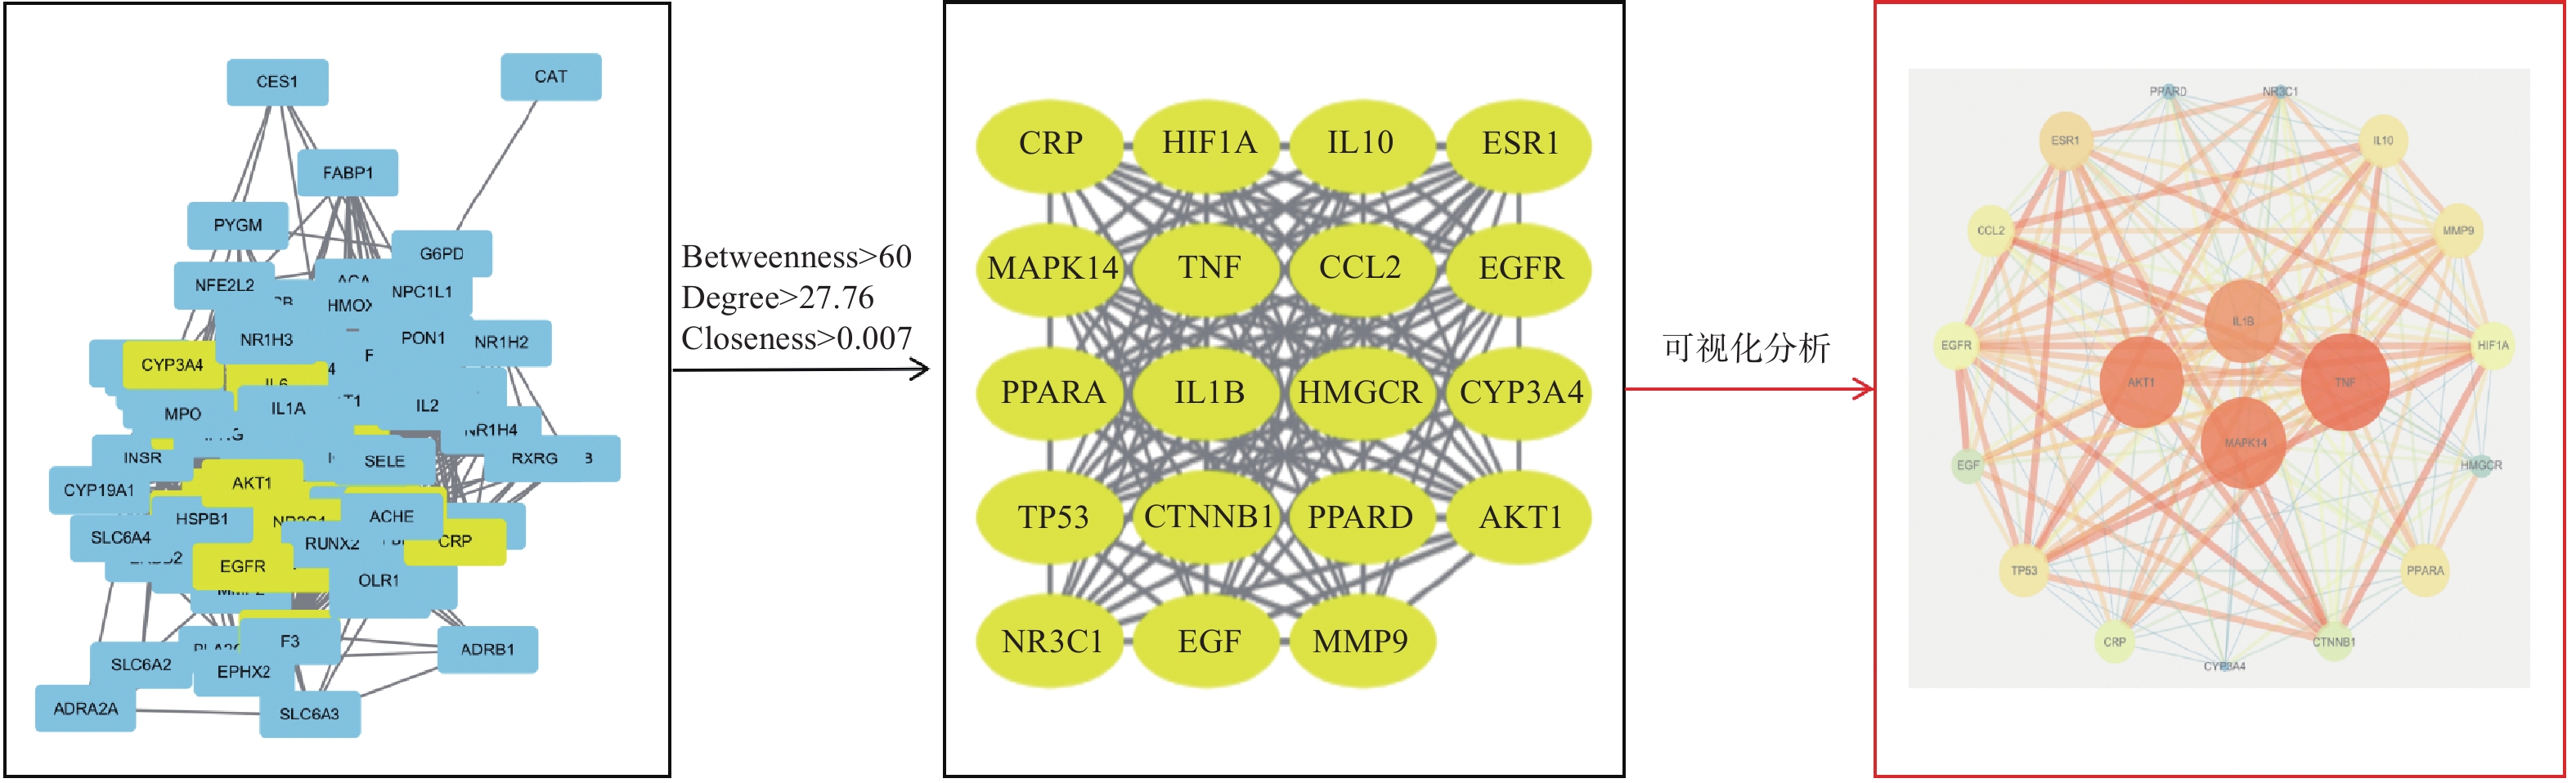
https://string-db.org/ ),构建蛋白质-蛋白质相互作用(PPI)网络图(图2)。以degree值大于等于所有节点degree均值为筛选标准[19],从PPI网络中筛选出19个关键靶点,构建核心PPI子网络图(图3),度值排名前4的核心靶点分别是AKT1、MAPK14、IL-1β及TNF。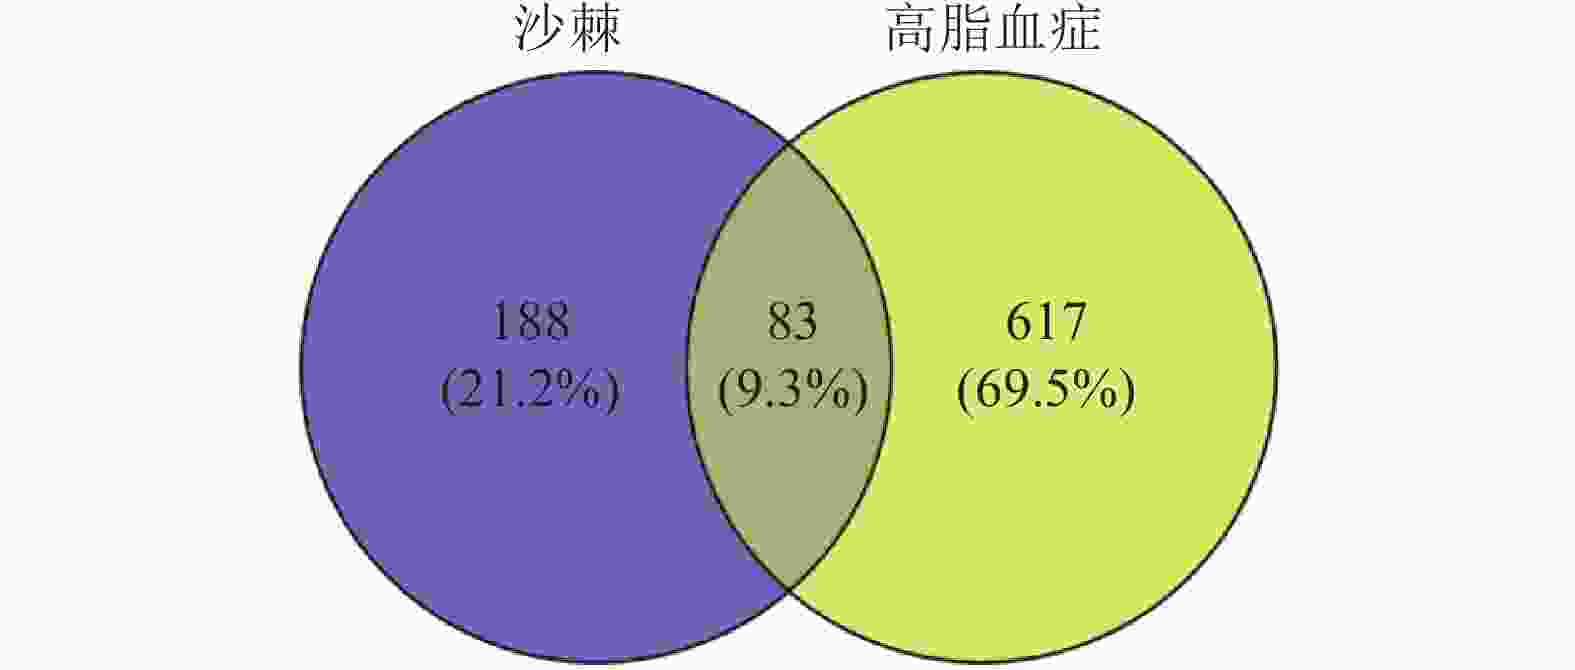
图 1 沙棘与高脂血症靶点交集韦恩图
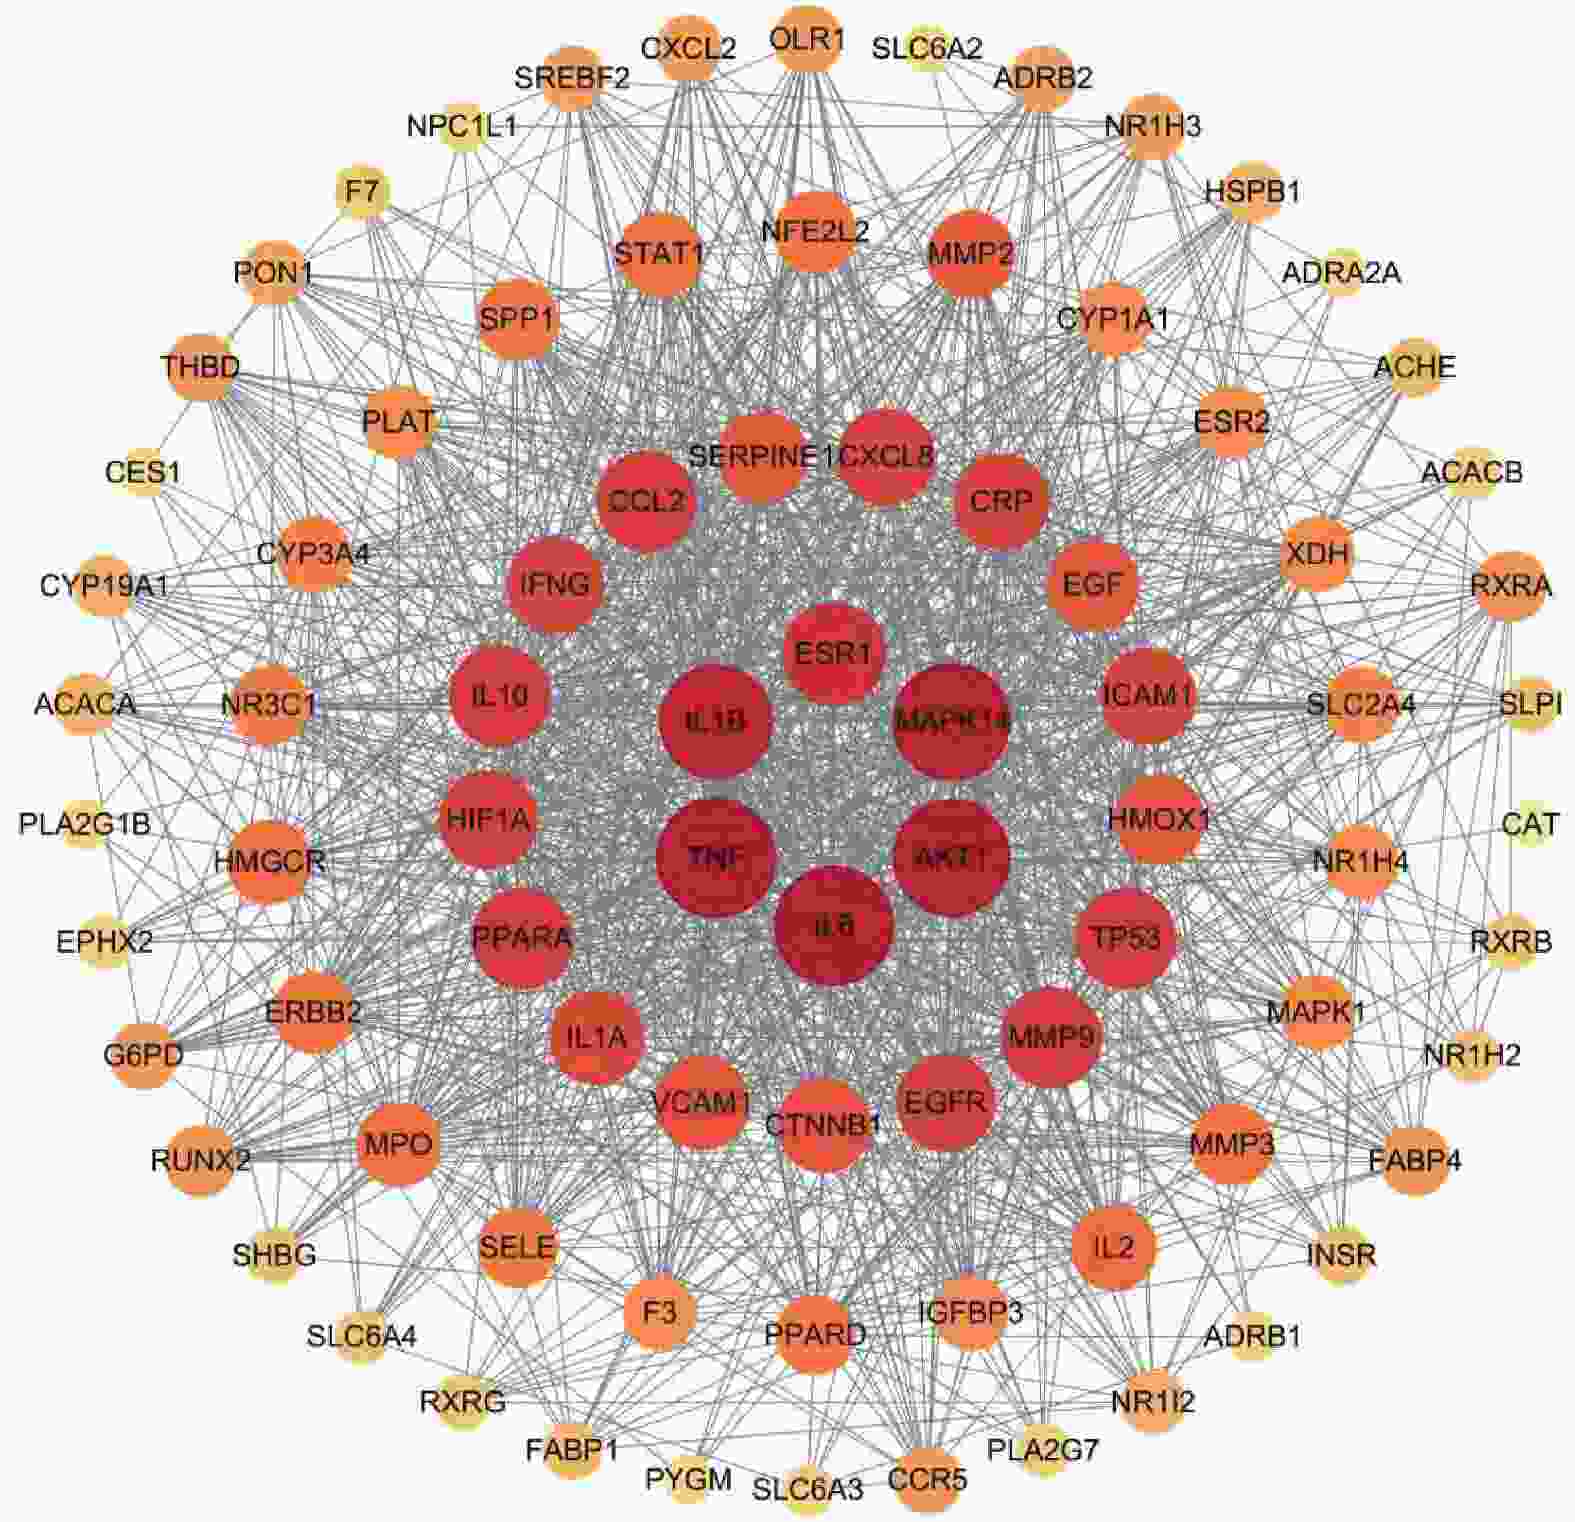
图 2 PPI蛋白网络图
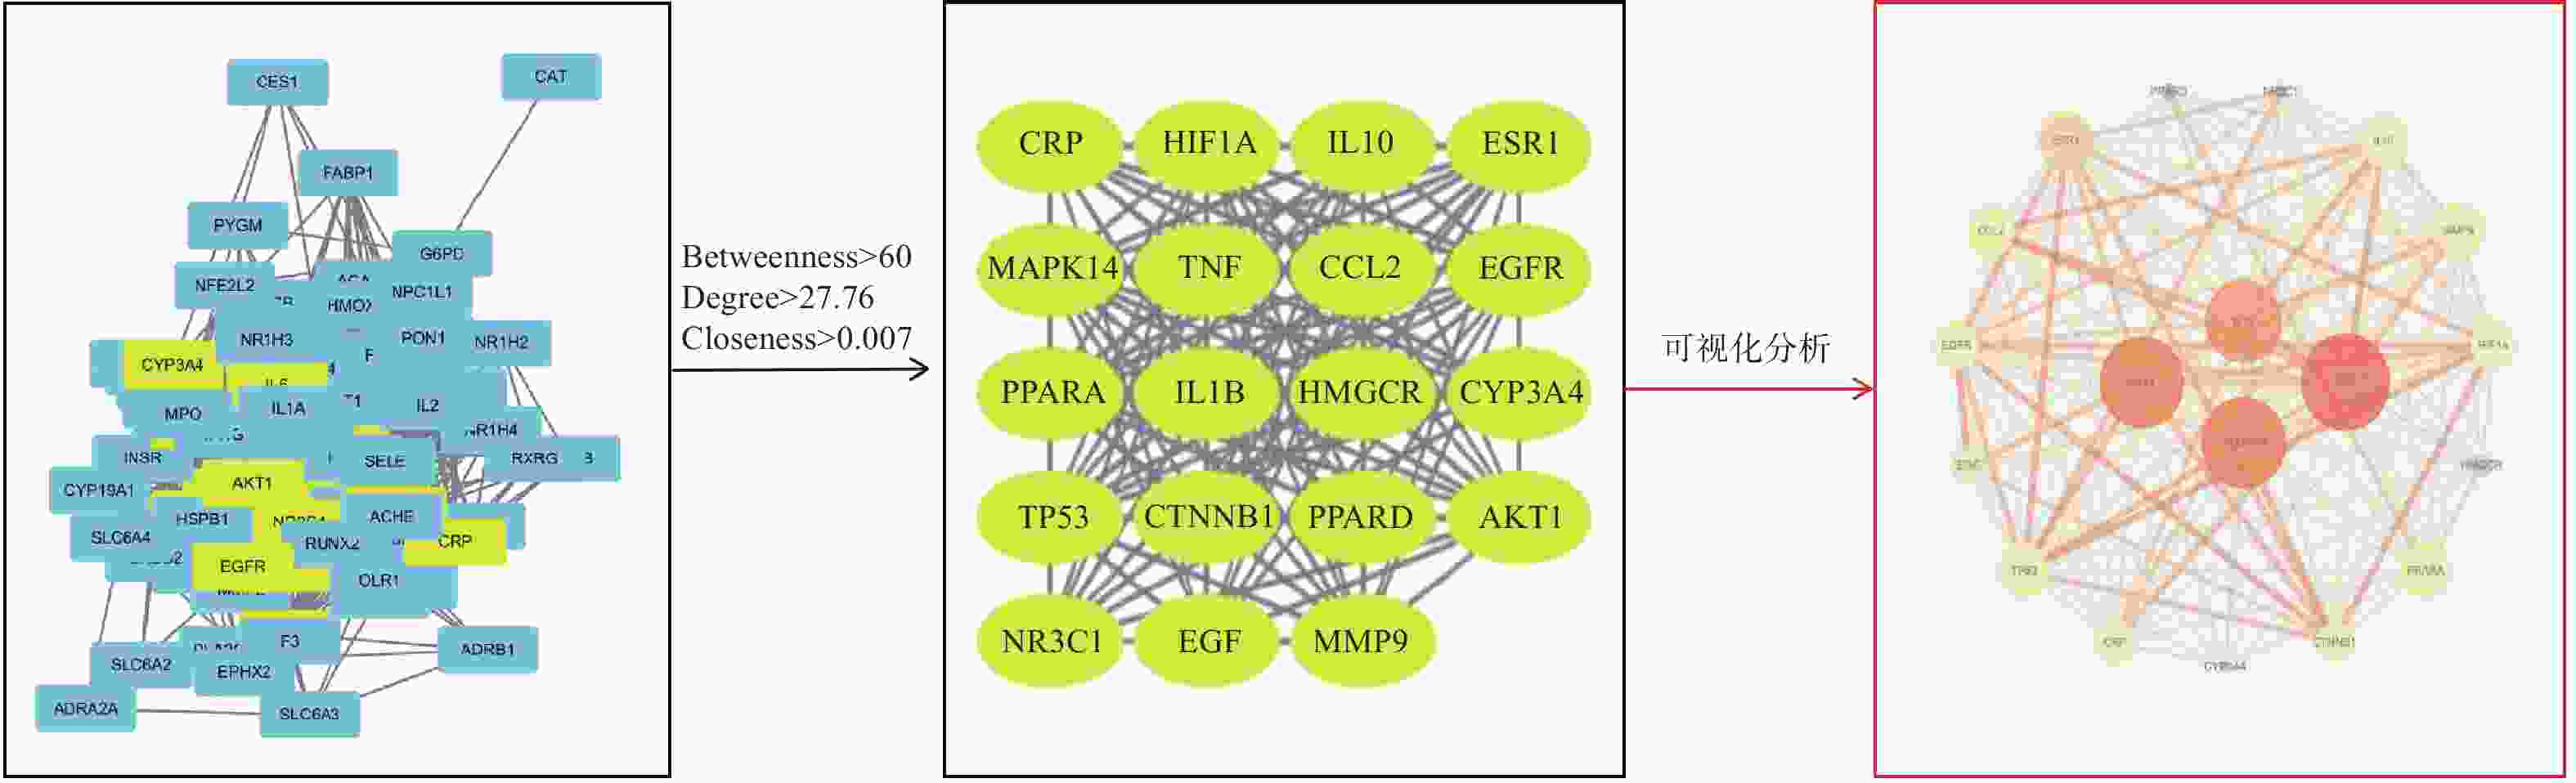
图 3 核心靶点筛选图核心靶点PPI子网络图
-
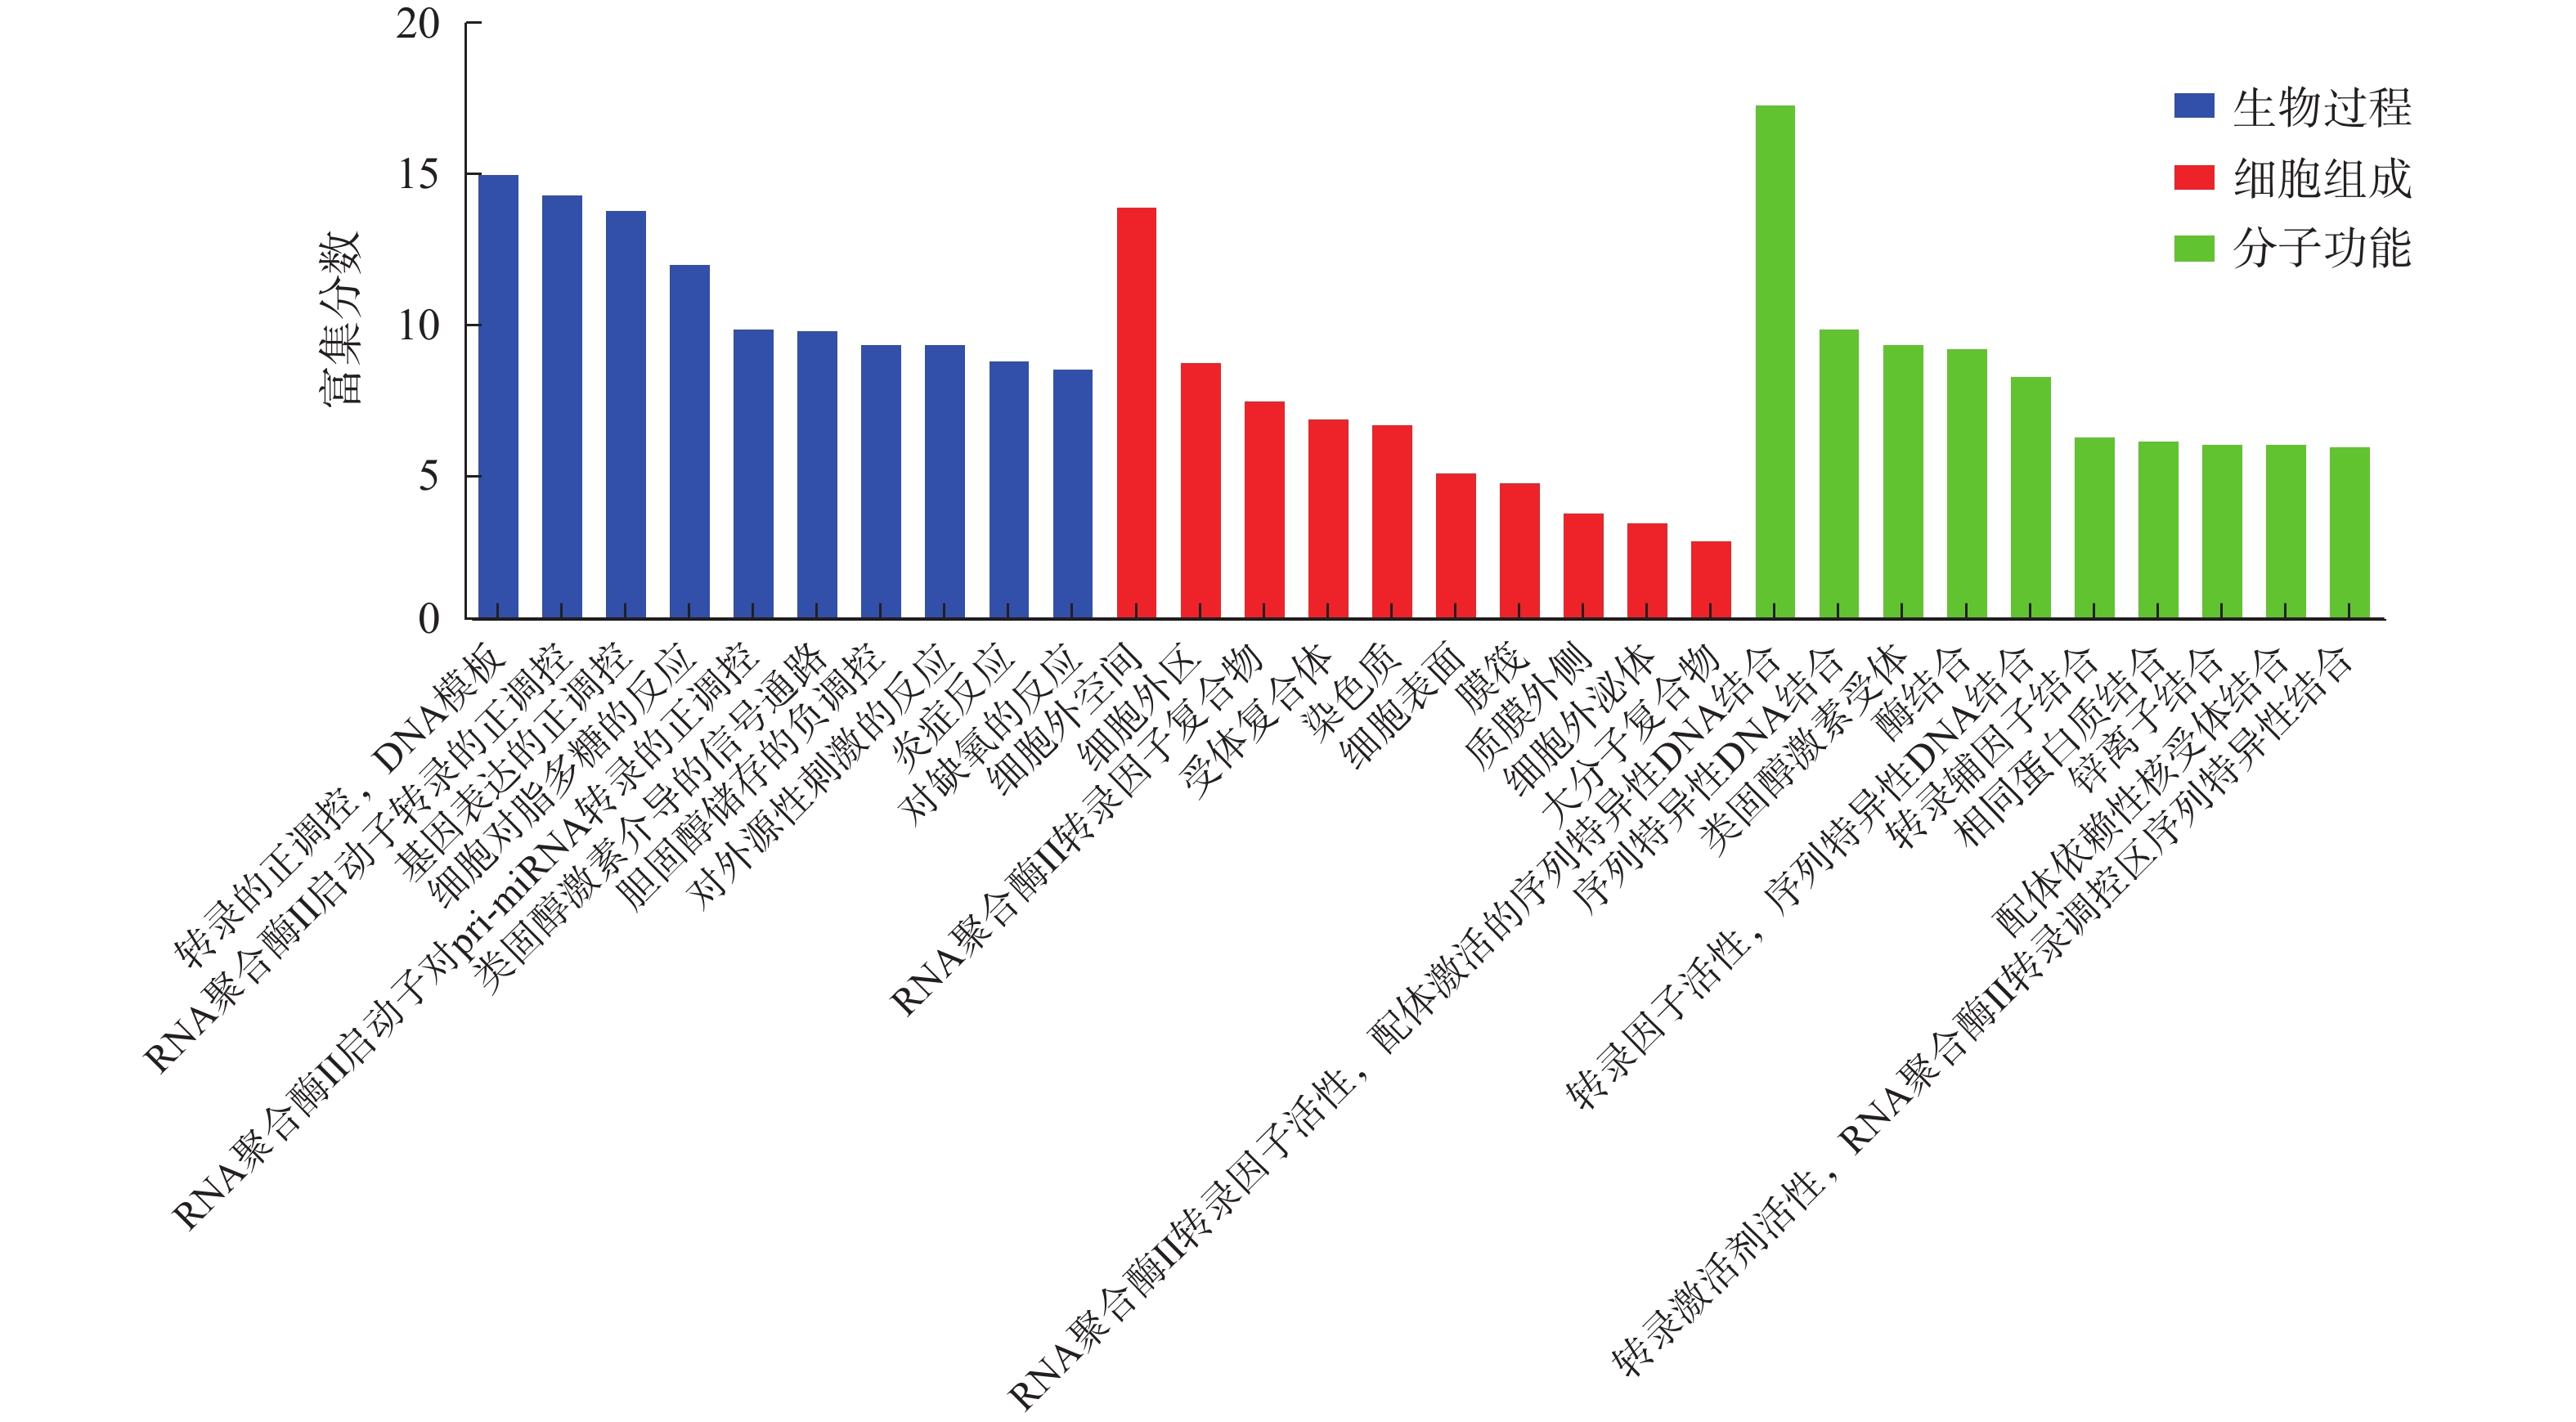
基于DAVID数据库对83个交集靶点的GO功能富集分析,共获得518条显著记录,其中生物过程(BP)388条,细胞组成(CC)40条,分子功能(MF)90条。以P<0.05为显著性阈值,分别选取GO各分类(生物过程BP、细胞组成CC、分子功能MF)中富集最显著的前10个条目(图4)和KEGG通路中富集最显著的前20条通路进行展示。富集到的靶点主要涉及BP中的转录的正向调控(含RNA聚合酶II启动子及基因表达调控)、对脂多糖刺激的细胞响应及炎症反应等;在CC方面,靶点主要富集在细胞外空间、细胞外部区域及细胞外泌体等;在MF方面,靶点主要涉及相同蛋白质间的相互作用以及作为转录因子活性的一部分与锌离子结合的能力上。
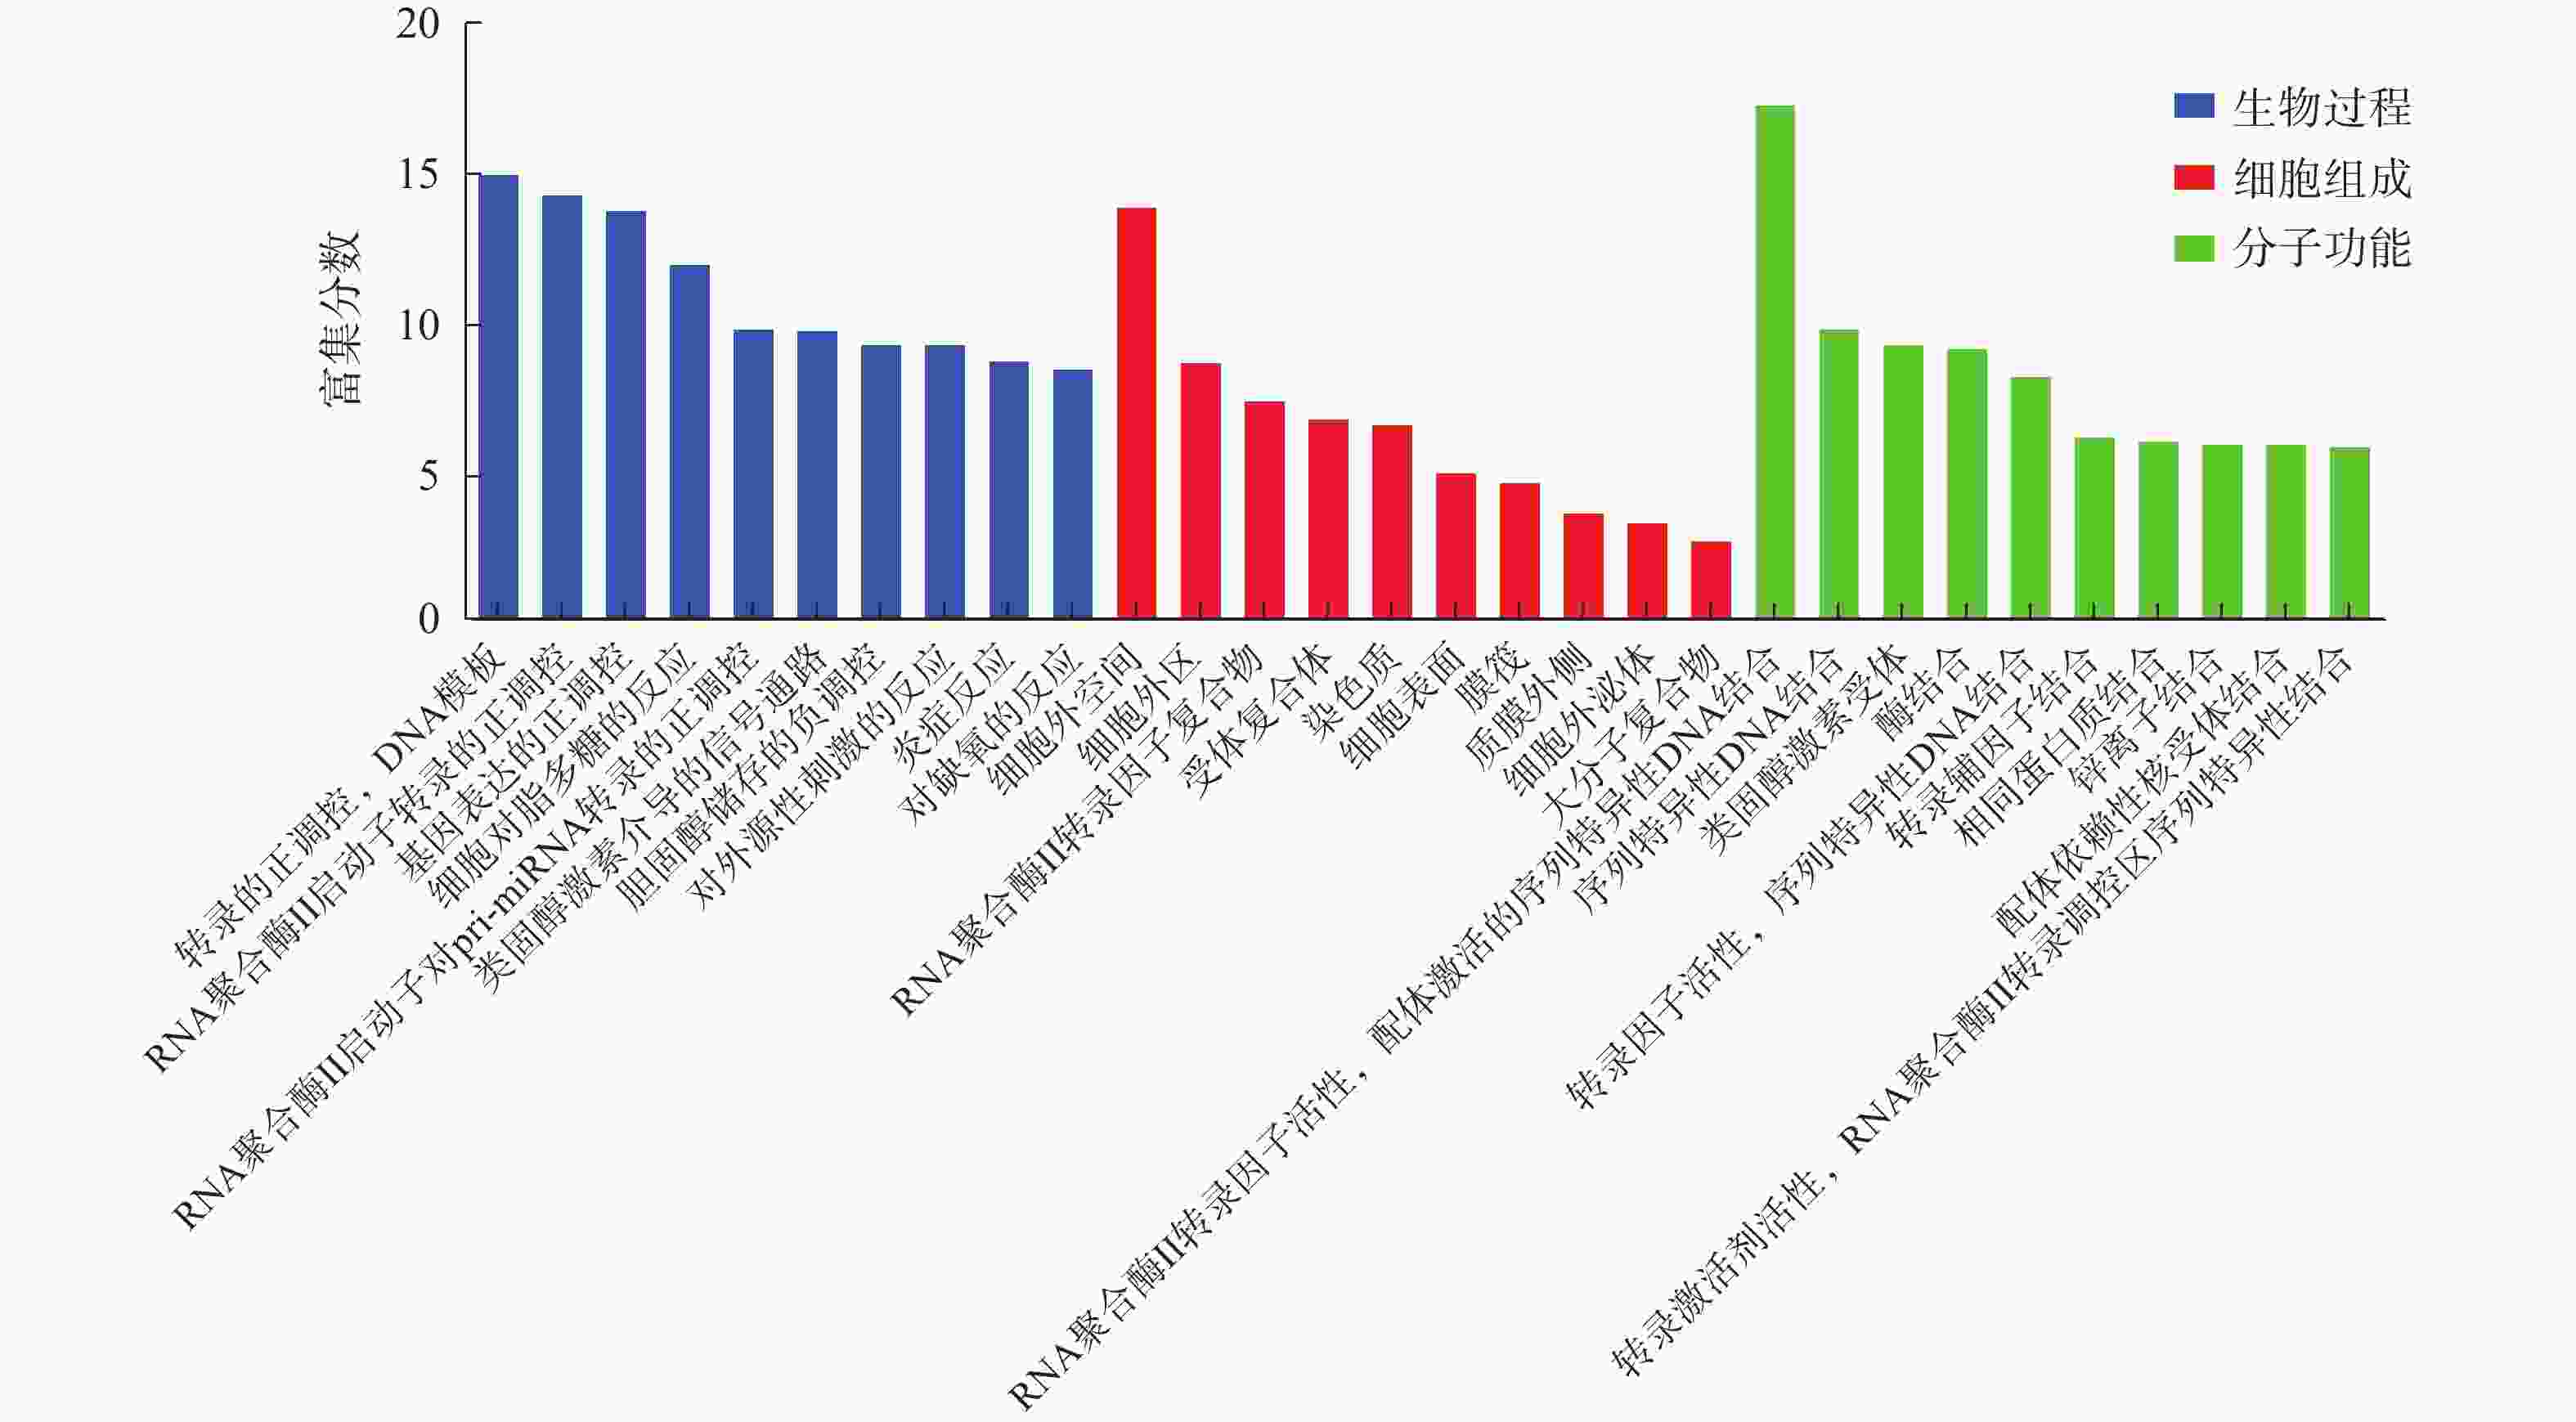
图 4 GO功能富集分析柱状图
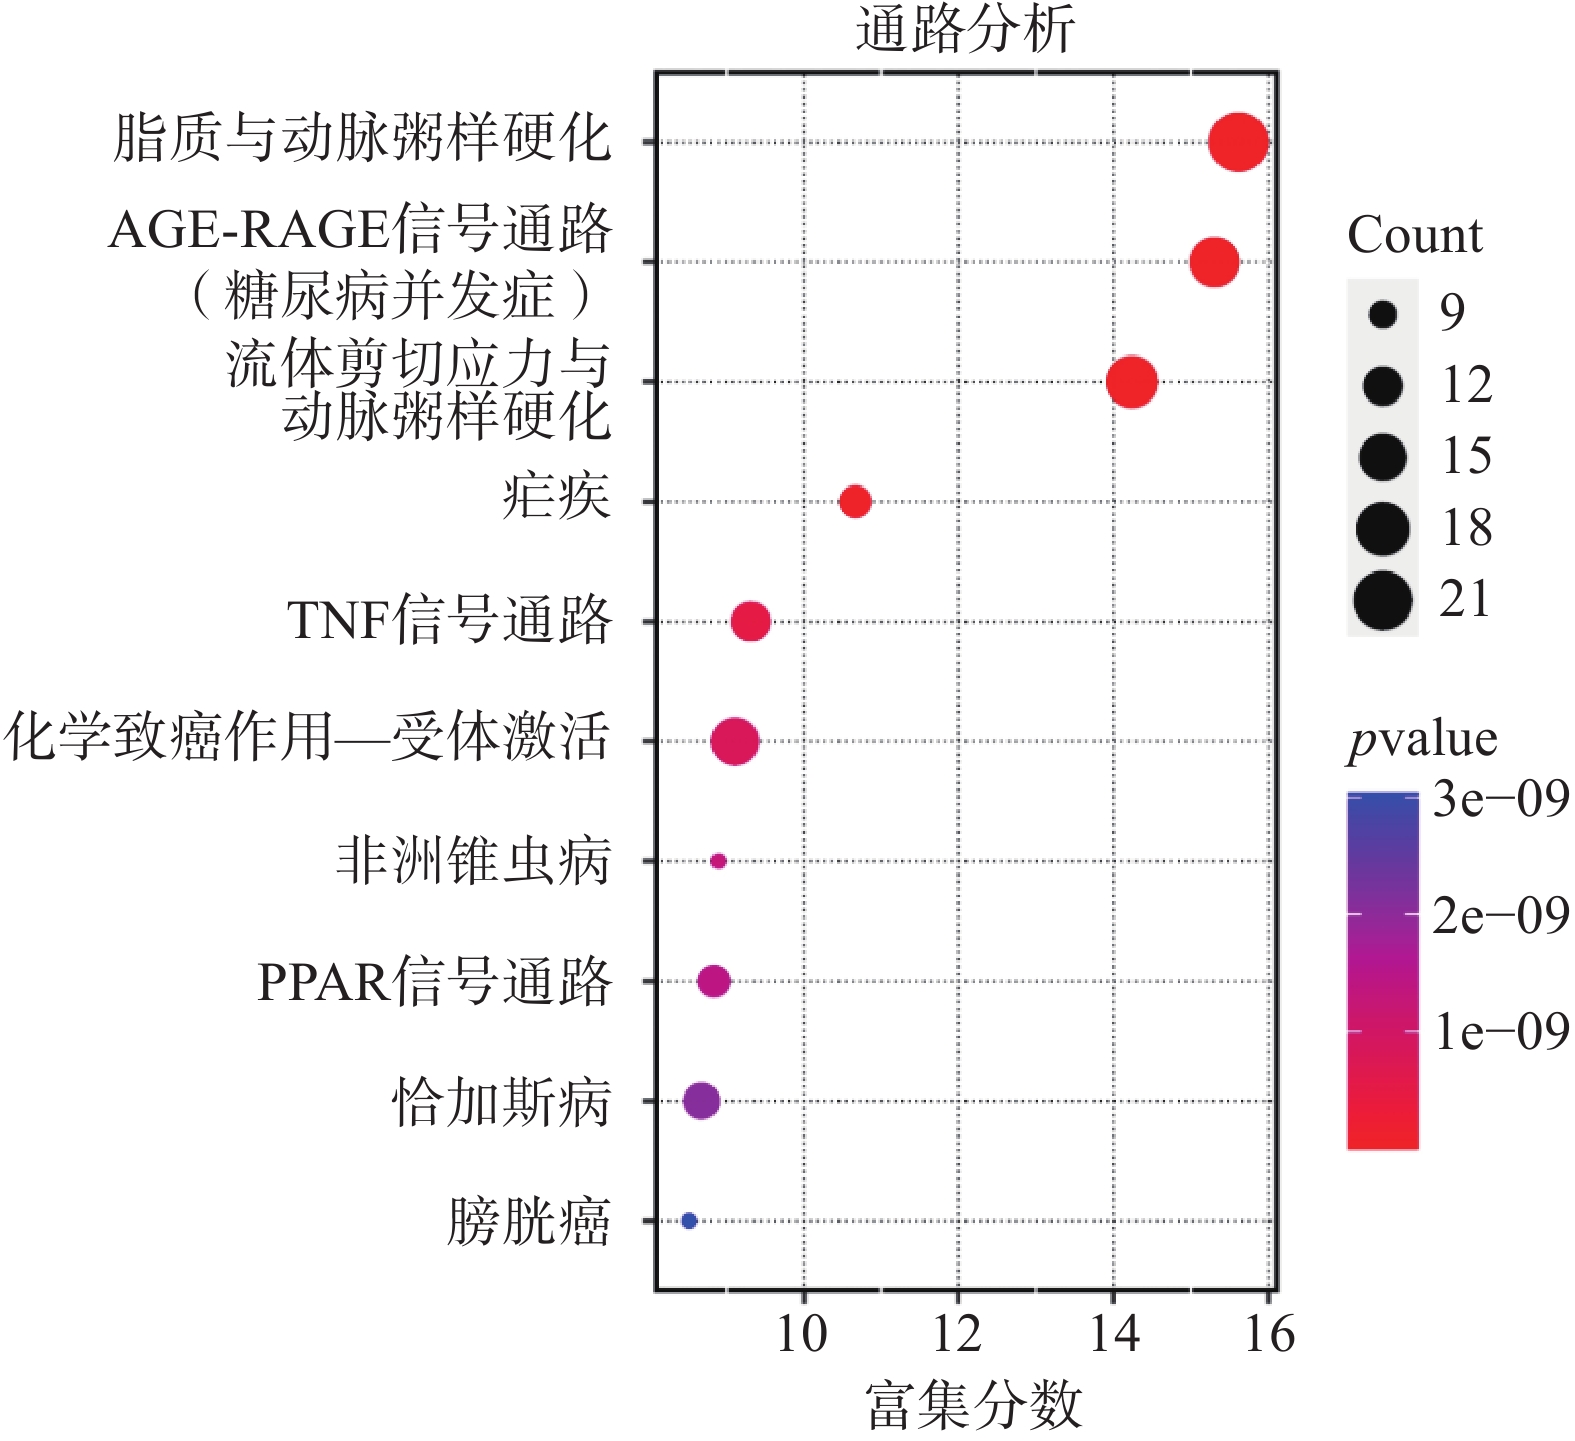
KEGG通路富集分析共识别出118条显著通路,排名前20的通路主要涉及脂质与动脉粥样硬化、AGE-RAGE信号通路(糖尿病并发症)及流体剪切应力与动脉粥样硬化(图5)。
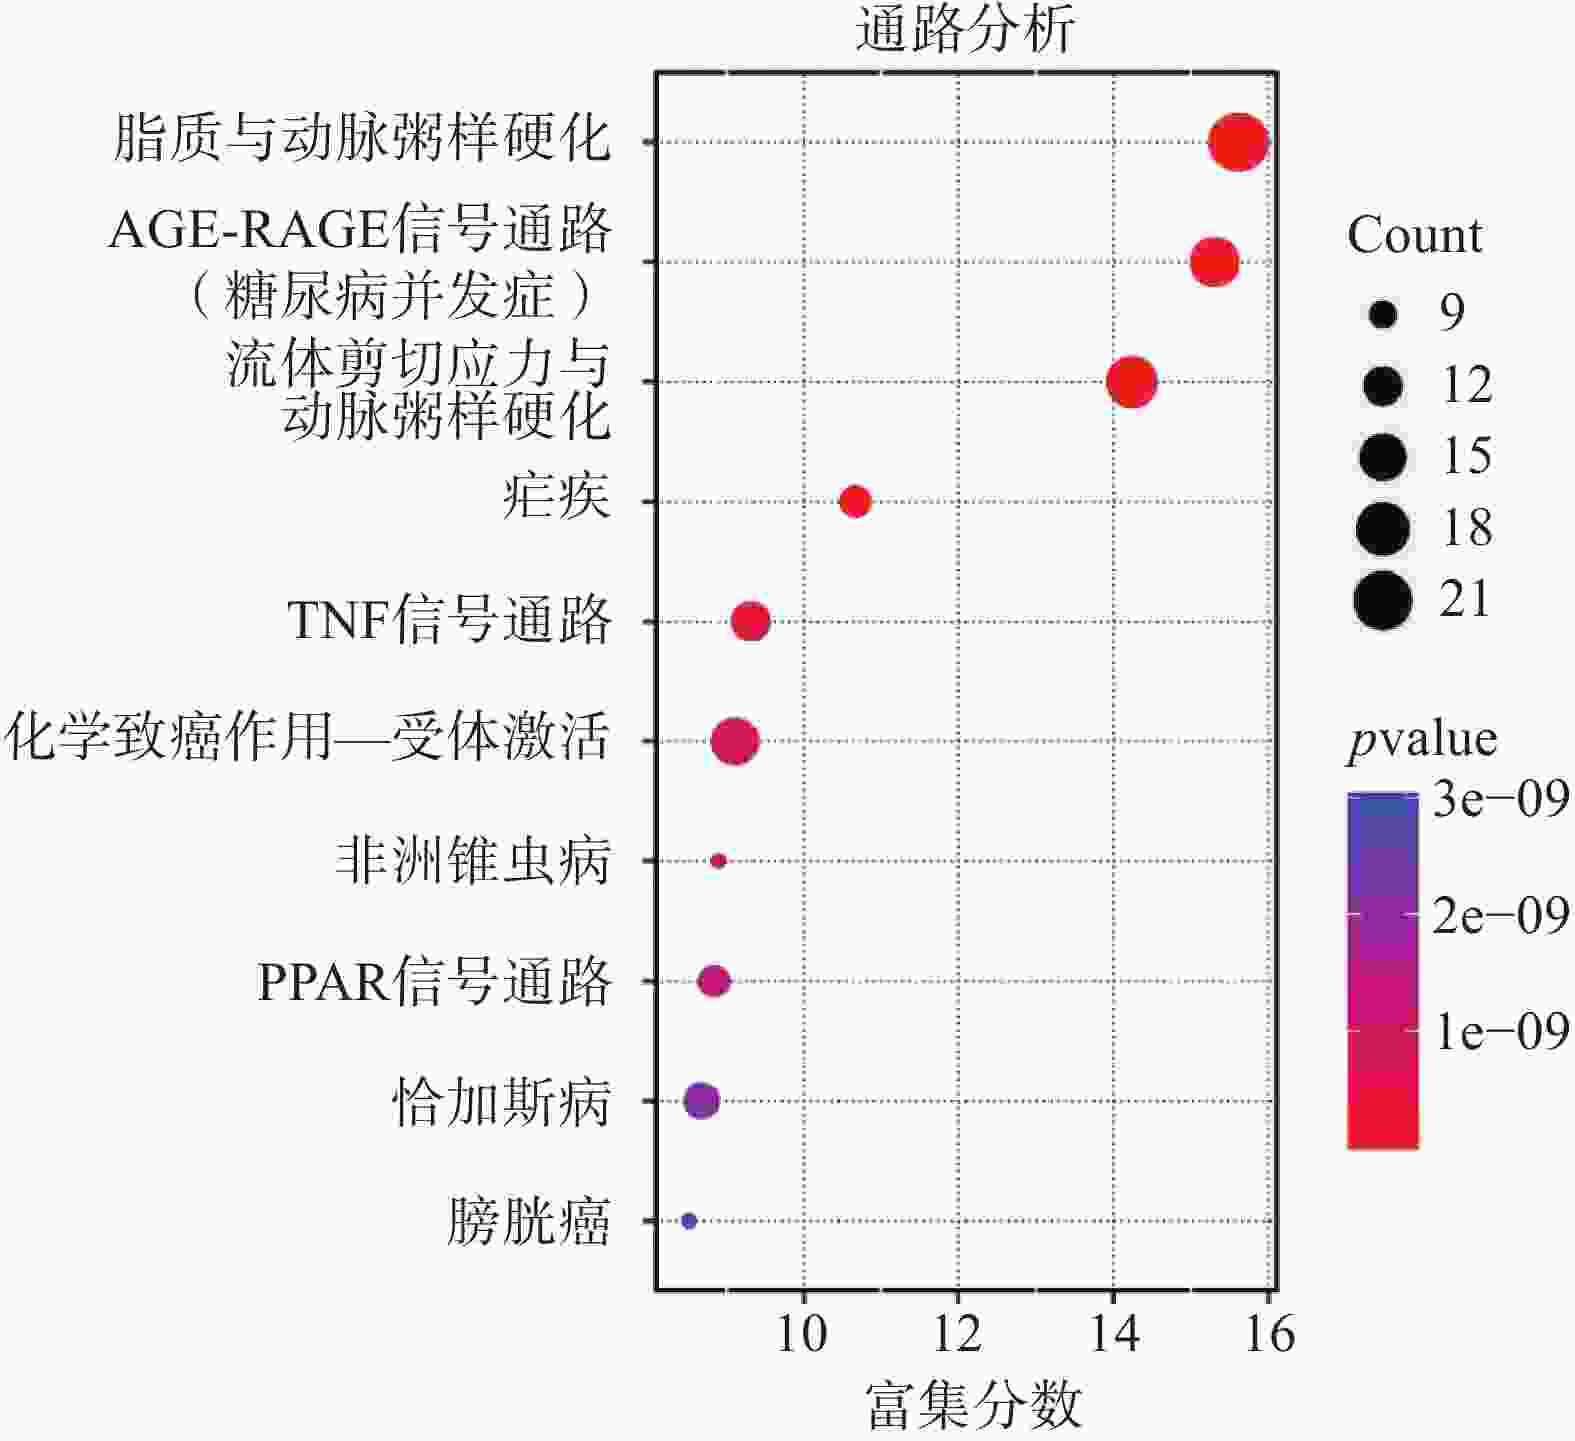
图 5 KEGG通路富集分析气泡图
-
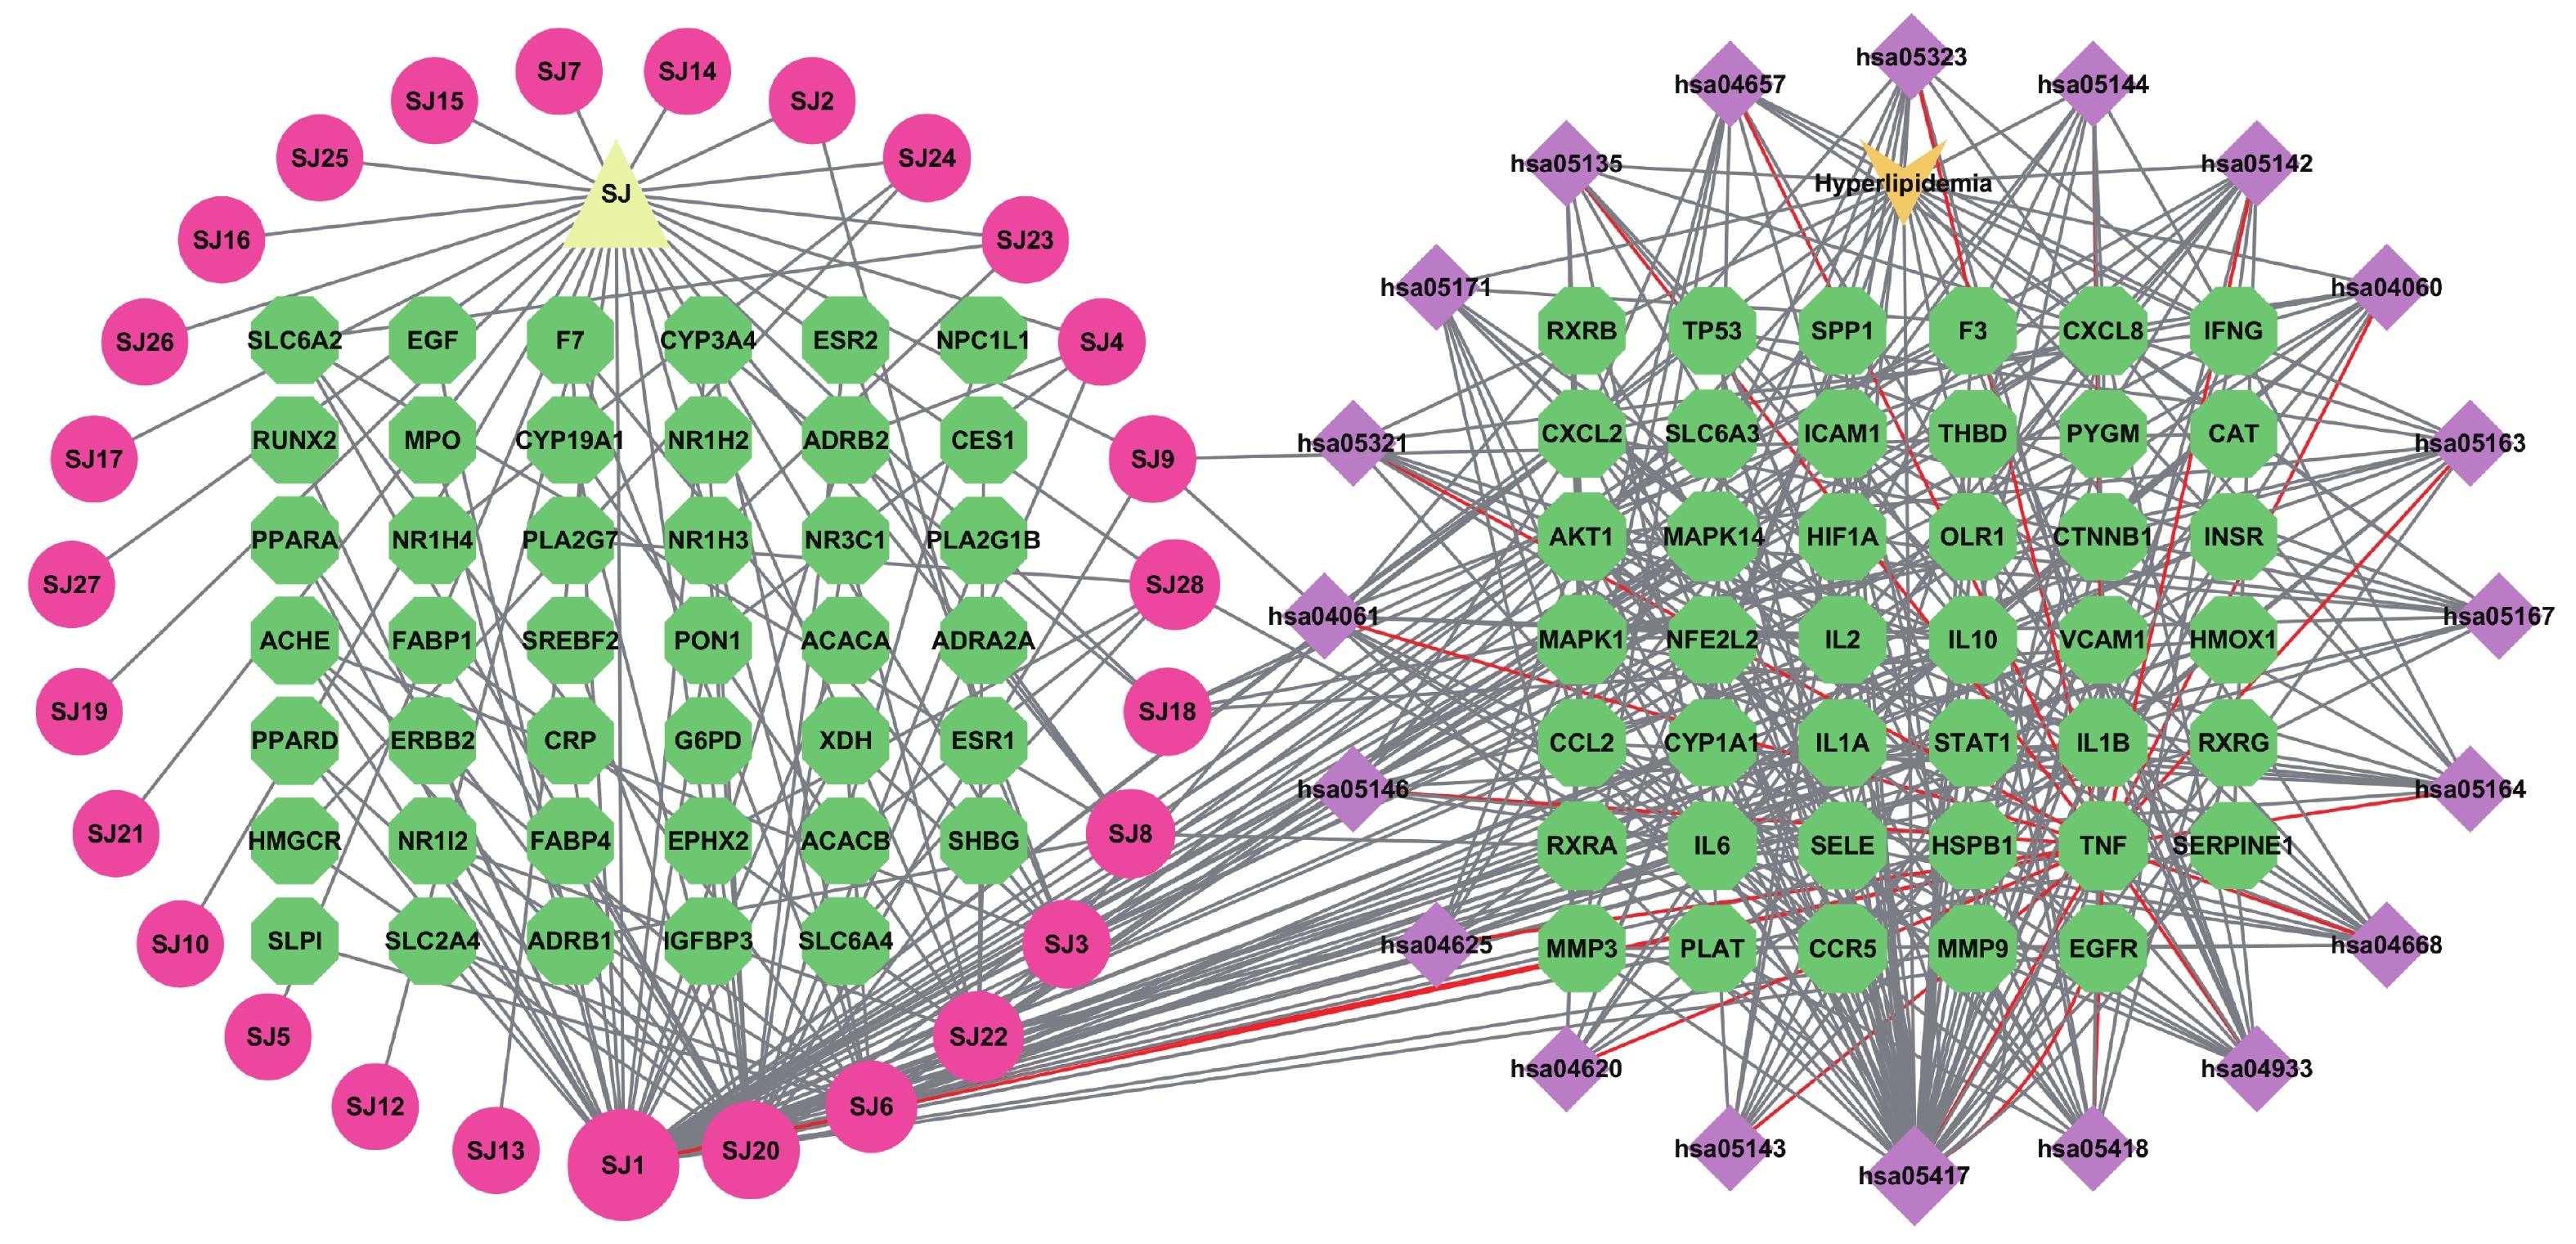
通过将筛选得到的药物-疾病共同靶点输入至Cytoscape 3.9.1软件中,构建了一个展示沙棘成分、靶点及信号通路之间关系的网络图(图6)。网络图由186个节点和724条边组成,其中,28个以红色圆圈表示的节点对应于沙棘中的活性物质,20个紫色菱形代表不同的信号路径,而82个绿色圆形节点则标识了与治疗目标相关的靶点。由图可知,SJ1(槲皮素)、SJ20(14,15-二甲基-α-植物甾醇)、SJ6(山柰酚)、SJ22 (角黄素)、SJ3(异鼠李素)可能为沙棘对抗高脂血症的过程的关键成分。
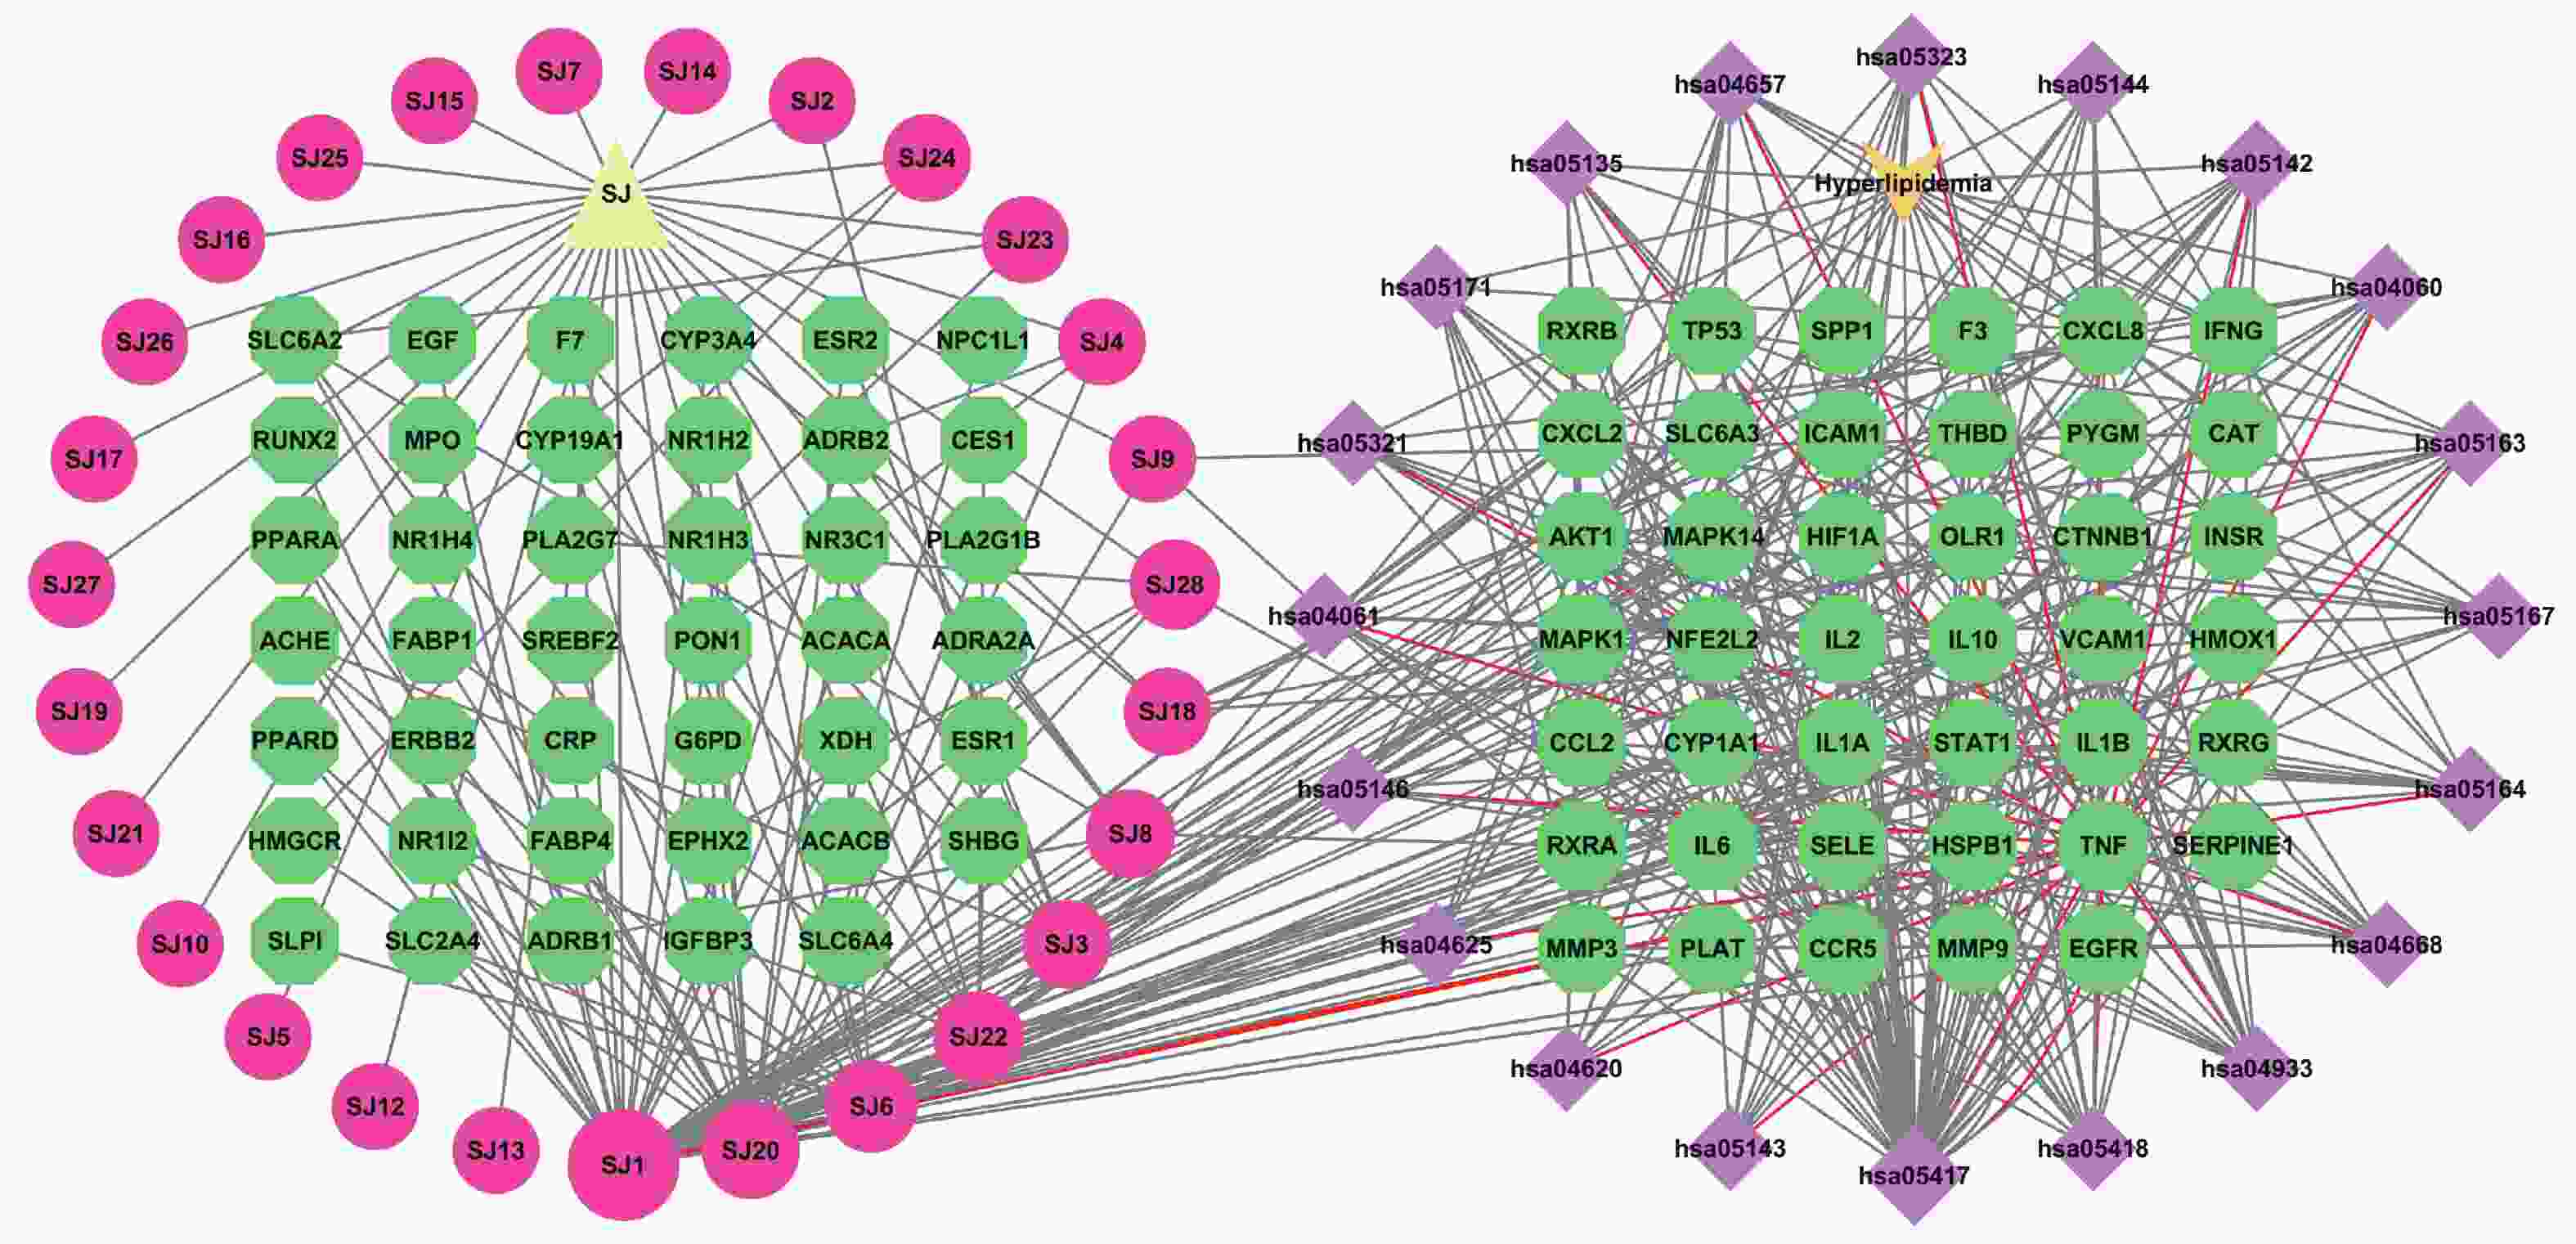
图 6 成分-靶点-信号通路网络
-
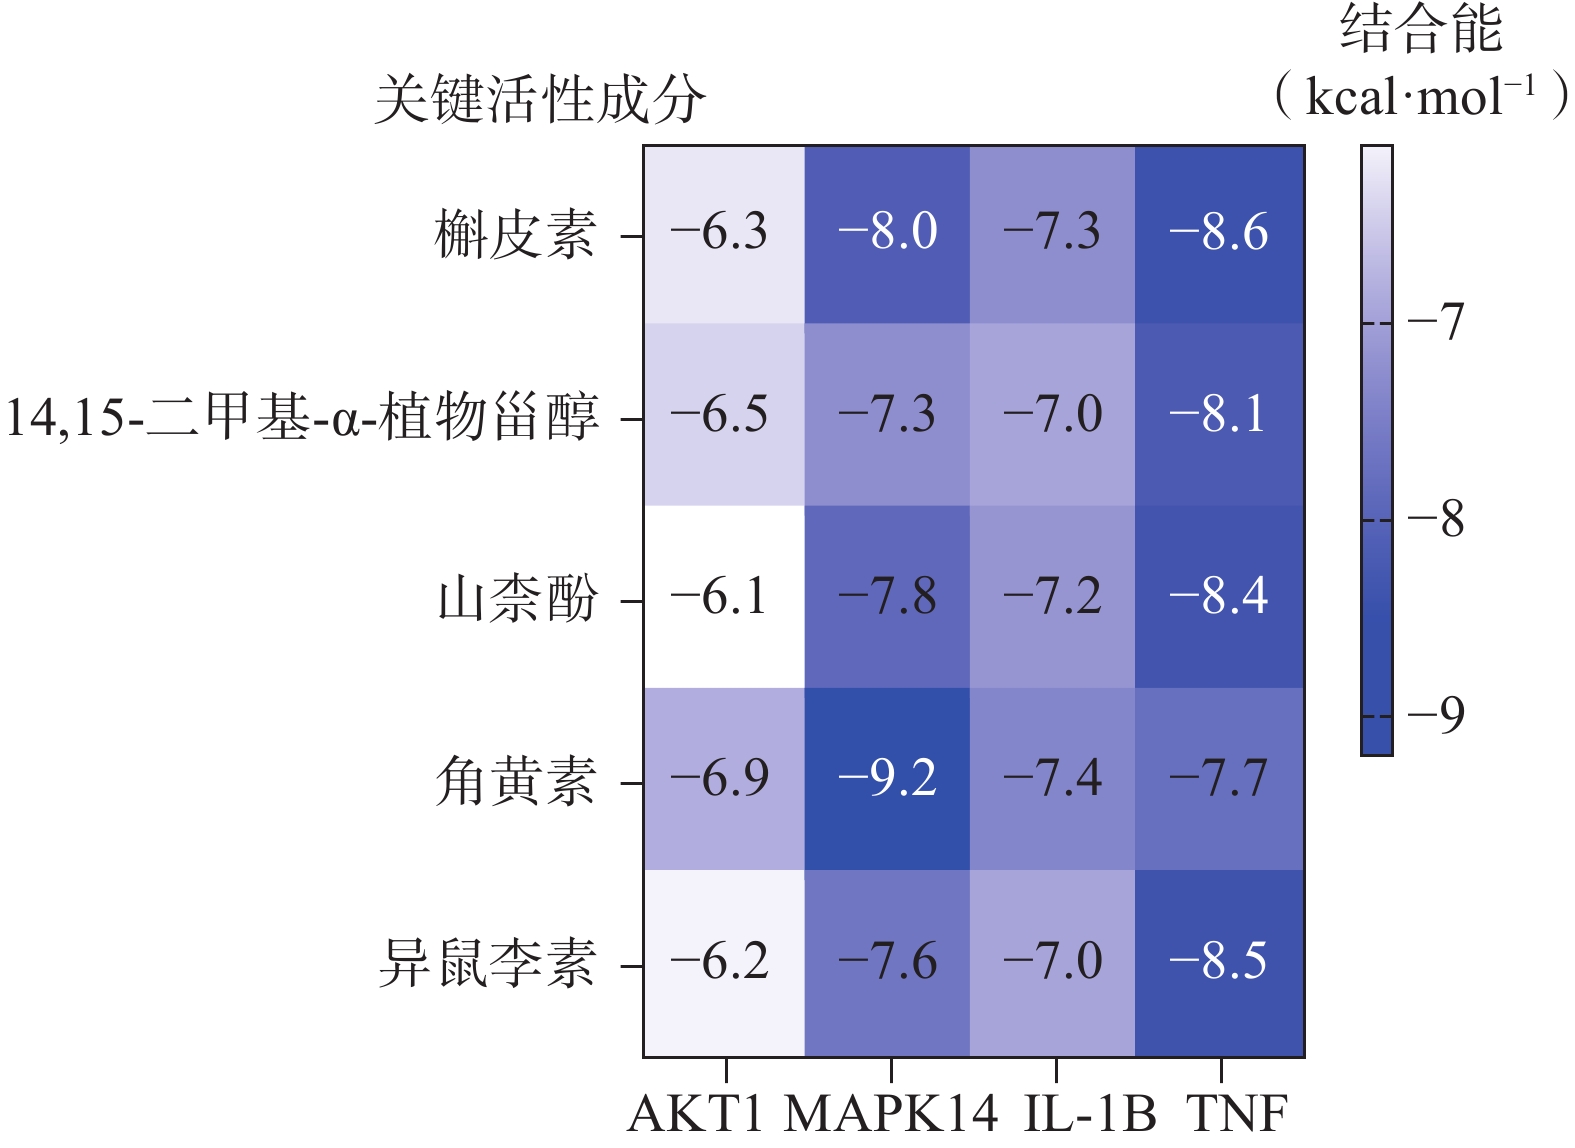
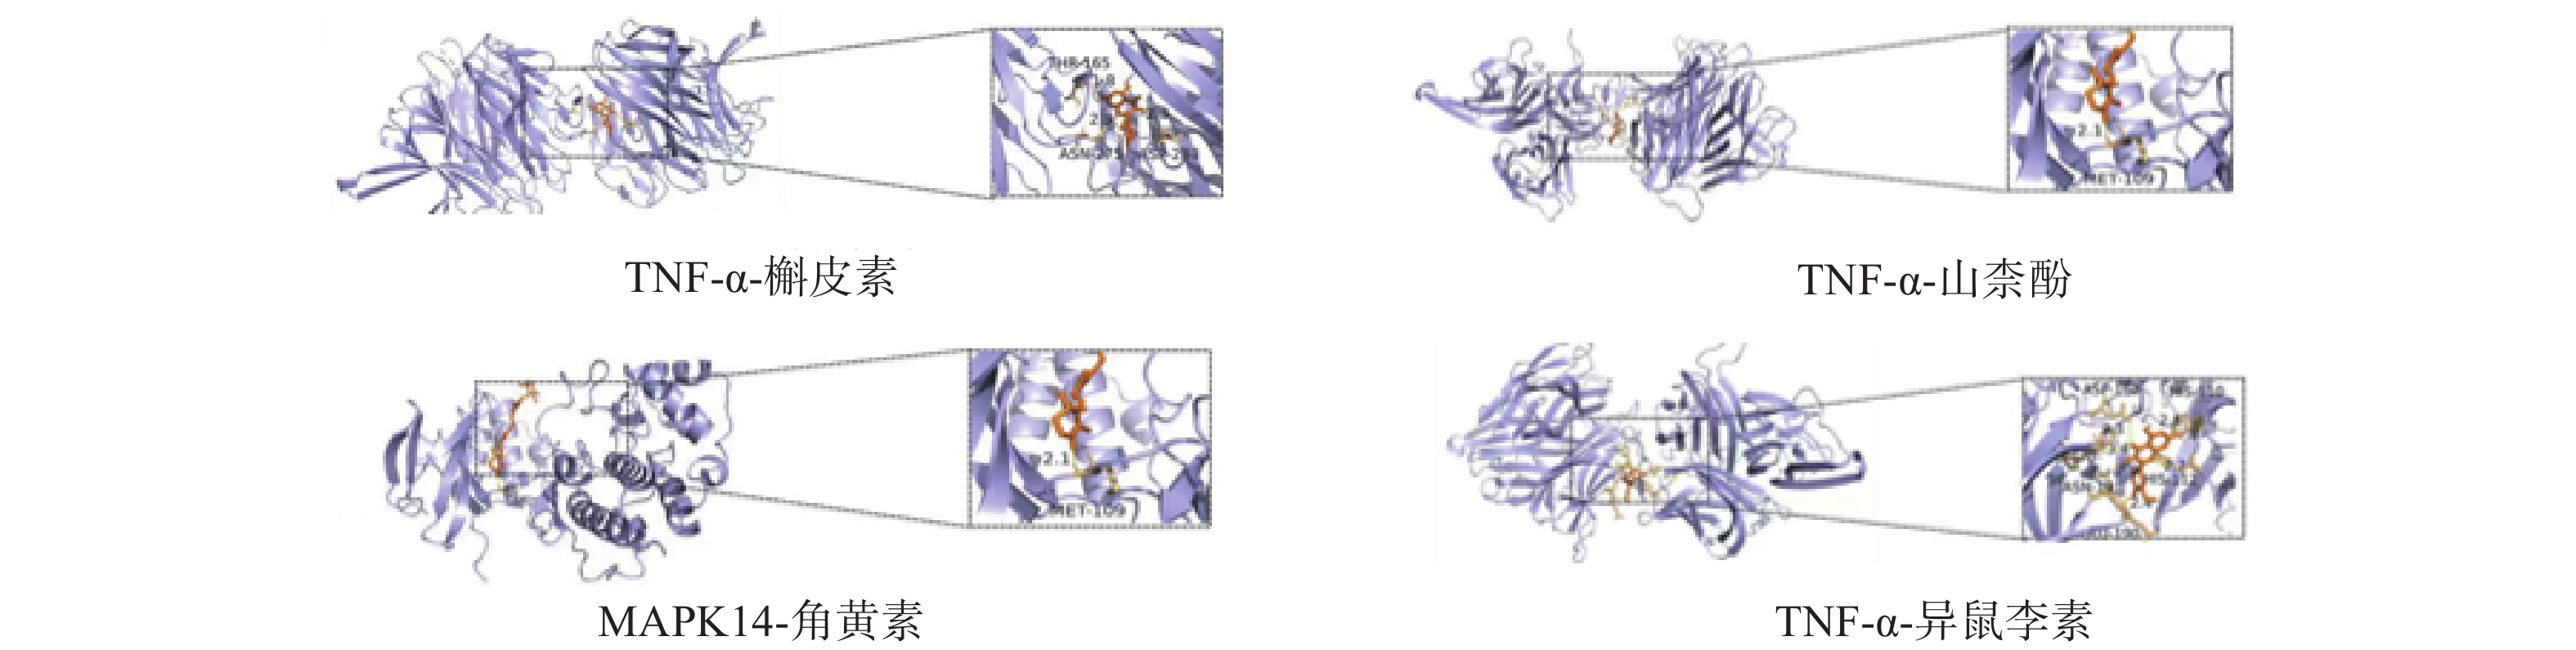
为了验证核心成分与靶点蛋白之间的相互作用,本研究运用 AutoDock Vina 1.5.6 软件进行了分子对接:将筛选出的排名前五的关键活性成分(槲皮素、14,15-二甲基-α-植物甾醇、山柰酚、角黄素、异鼠李素)分别与4个核心靶点蛋白AKT1(PDB ID: 1H10)、MAPK14(PDB ID: 1A9U)、IL-1β(PDB ID: 1HIB)及TNF(PDB ID: 4ZCH)之间的亲和力进行评估,将得出的结合能作热图分析(图7),结合能越低表明活性成分越容易与受体结合。根据结果得出,槲皮素、14,15-二甲基-α-植物甾醇、山柰酚、角黄素、异鼠李素与AKT1、MAPK14、IL-1β及TNF靶点的结合能均低于-5 kcal/mol,提示关键成分与靶点之间有较好的亲和力,可能为沙棘治疗高脂血症的机制之一。将结合能最低的4个构象进行可视化展示(图8)。
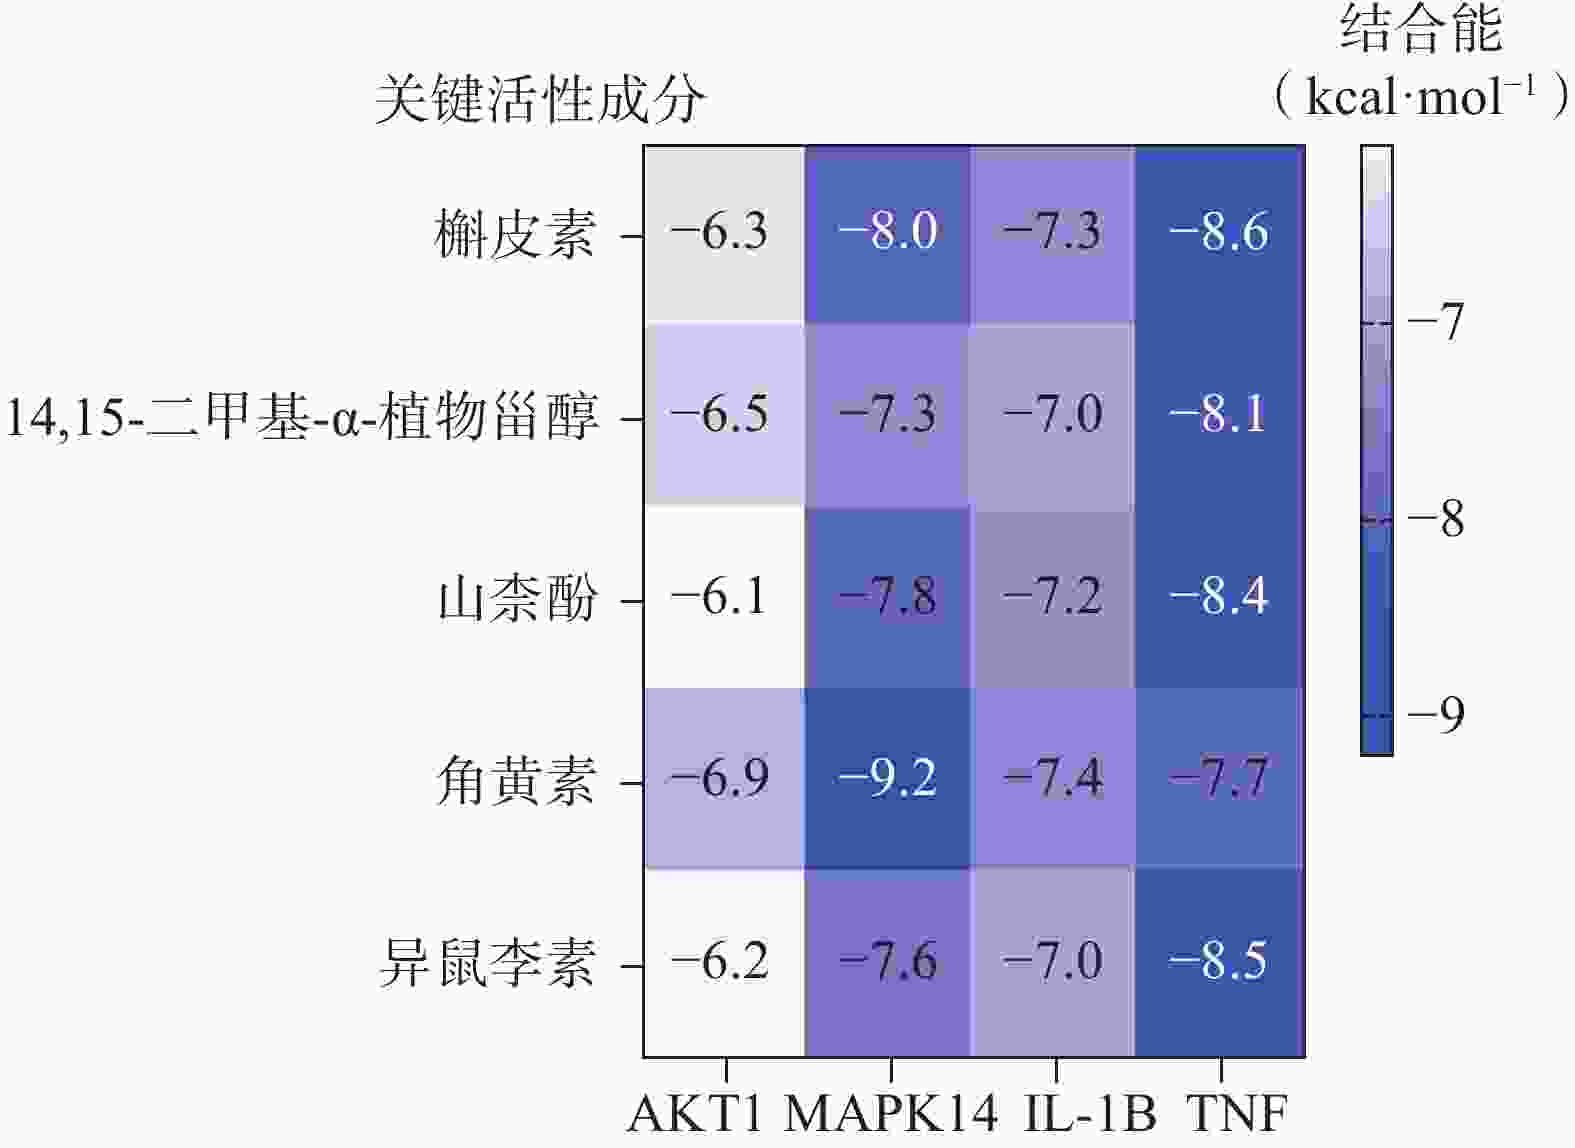
图 7 活性成分与关键靶点分子对接结果热图(kcal/mol)
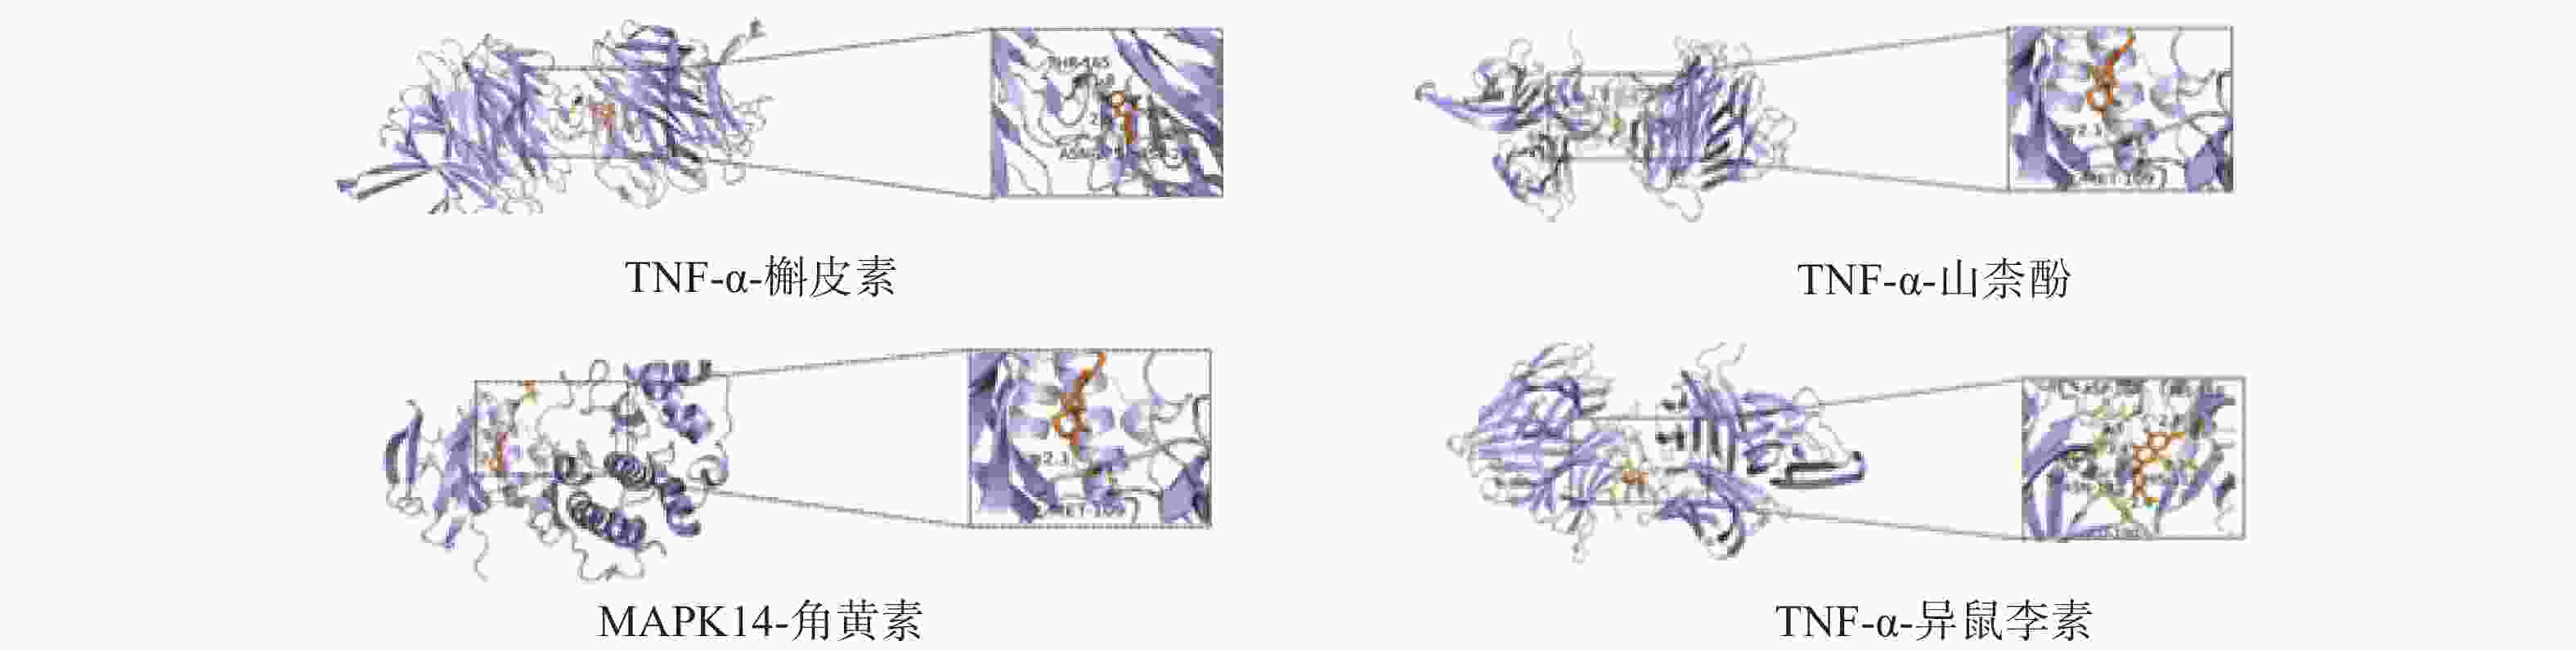
图 8 活性成分与关键靶点的分子对接示意图
-
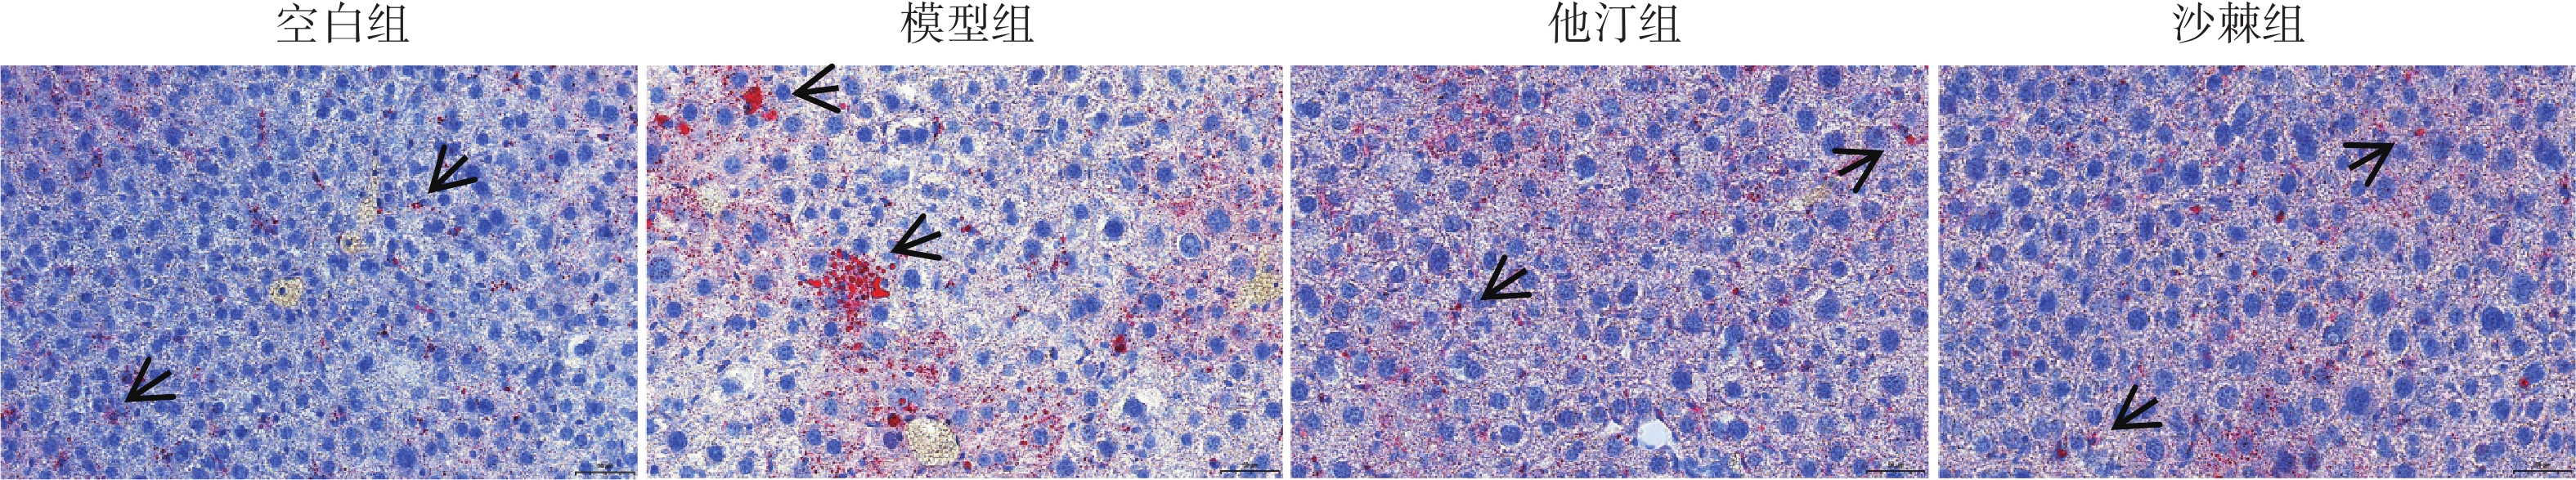
空白组仅偶见散在细小红色脂滴,直径较小,分布稀疏,无明显融合。模型组红色区域最多,脂滴直径大小不等,大量融合成“葡萄串”或片状。他汀组与沙棘组相比于模型组,红色区域明显减少,脂滴以小颗粒为主,偶见中等大小空泡,分布较为分散(图9)。
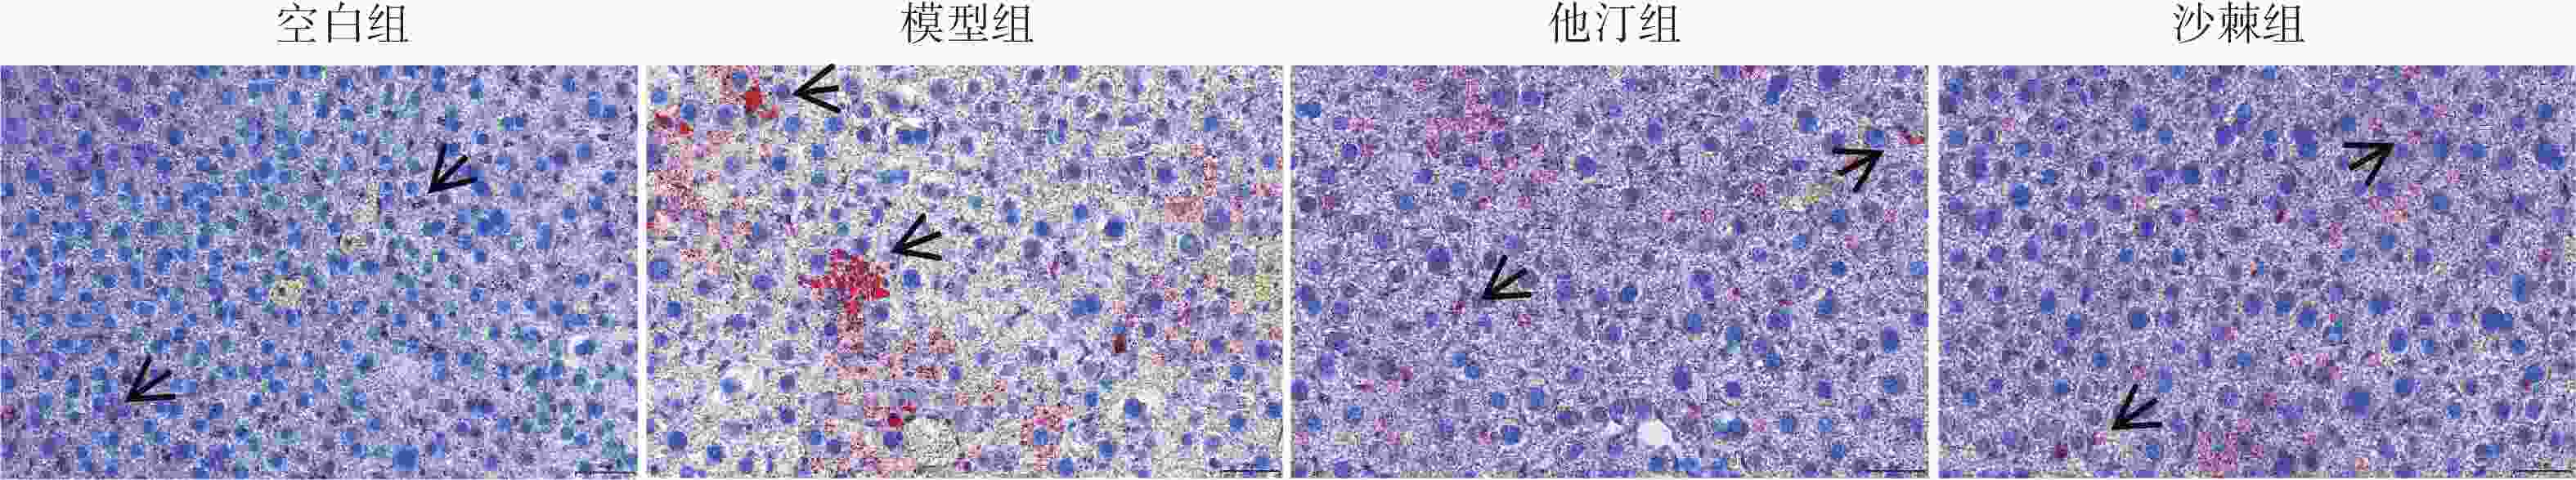
图 9 各干预措施对高脂血症小鼠肝脏病理的影响(HE,×40)
-
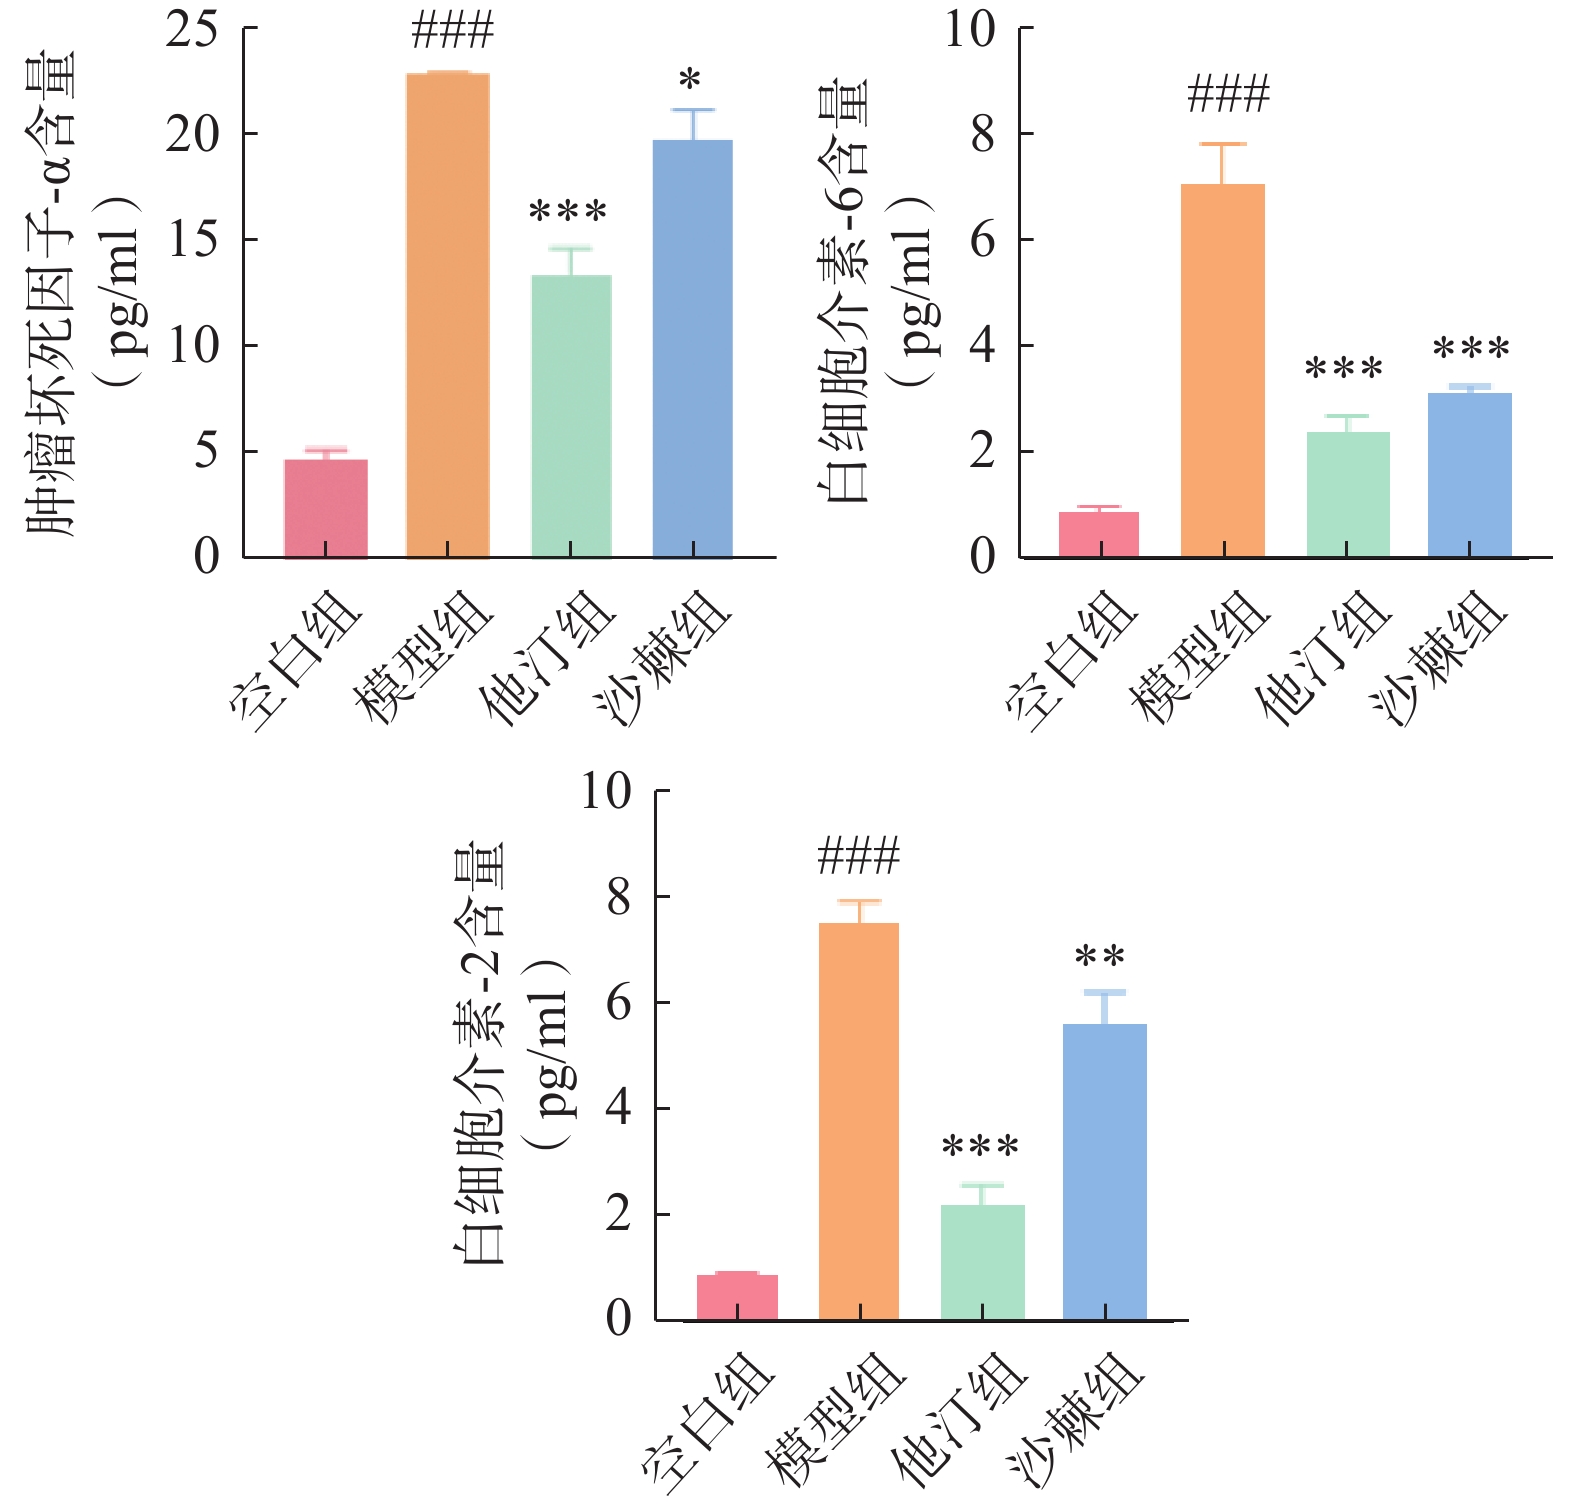
小鼠血清中TNF-α、IL-6和IL-2的含量发生了显著变化(图10)。与空白组相比,模型组的3种炎症因子含量明显增加(P<0.001)。与模型组相比,他汀组与沙棘组对3种炎症因子均有抑制作用,其中,沙棘组对IL-6的降低最为显著(P<0.001)。他汀组与沙棘组之间有无比较?
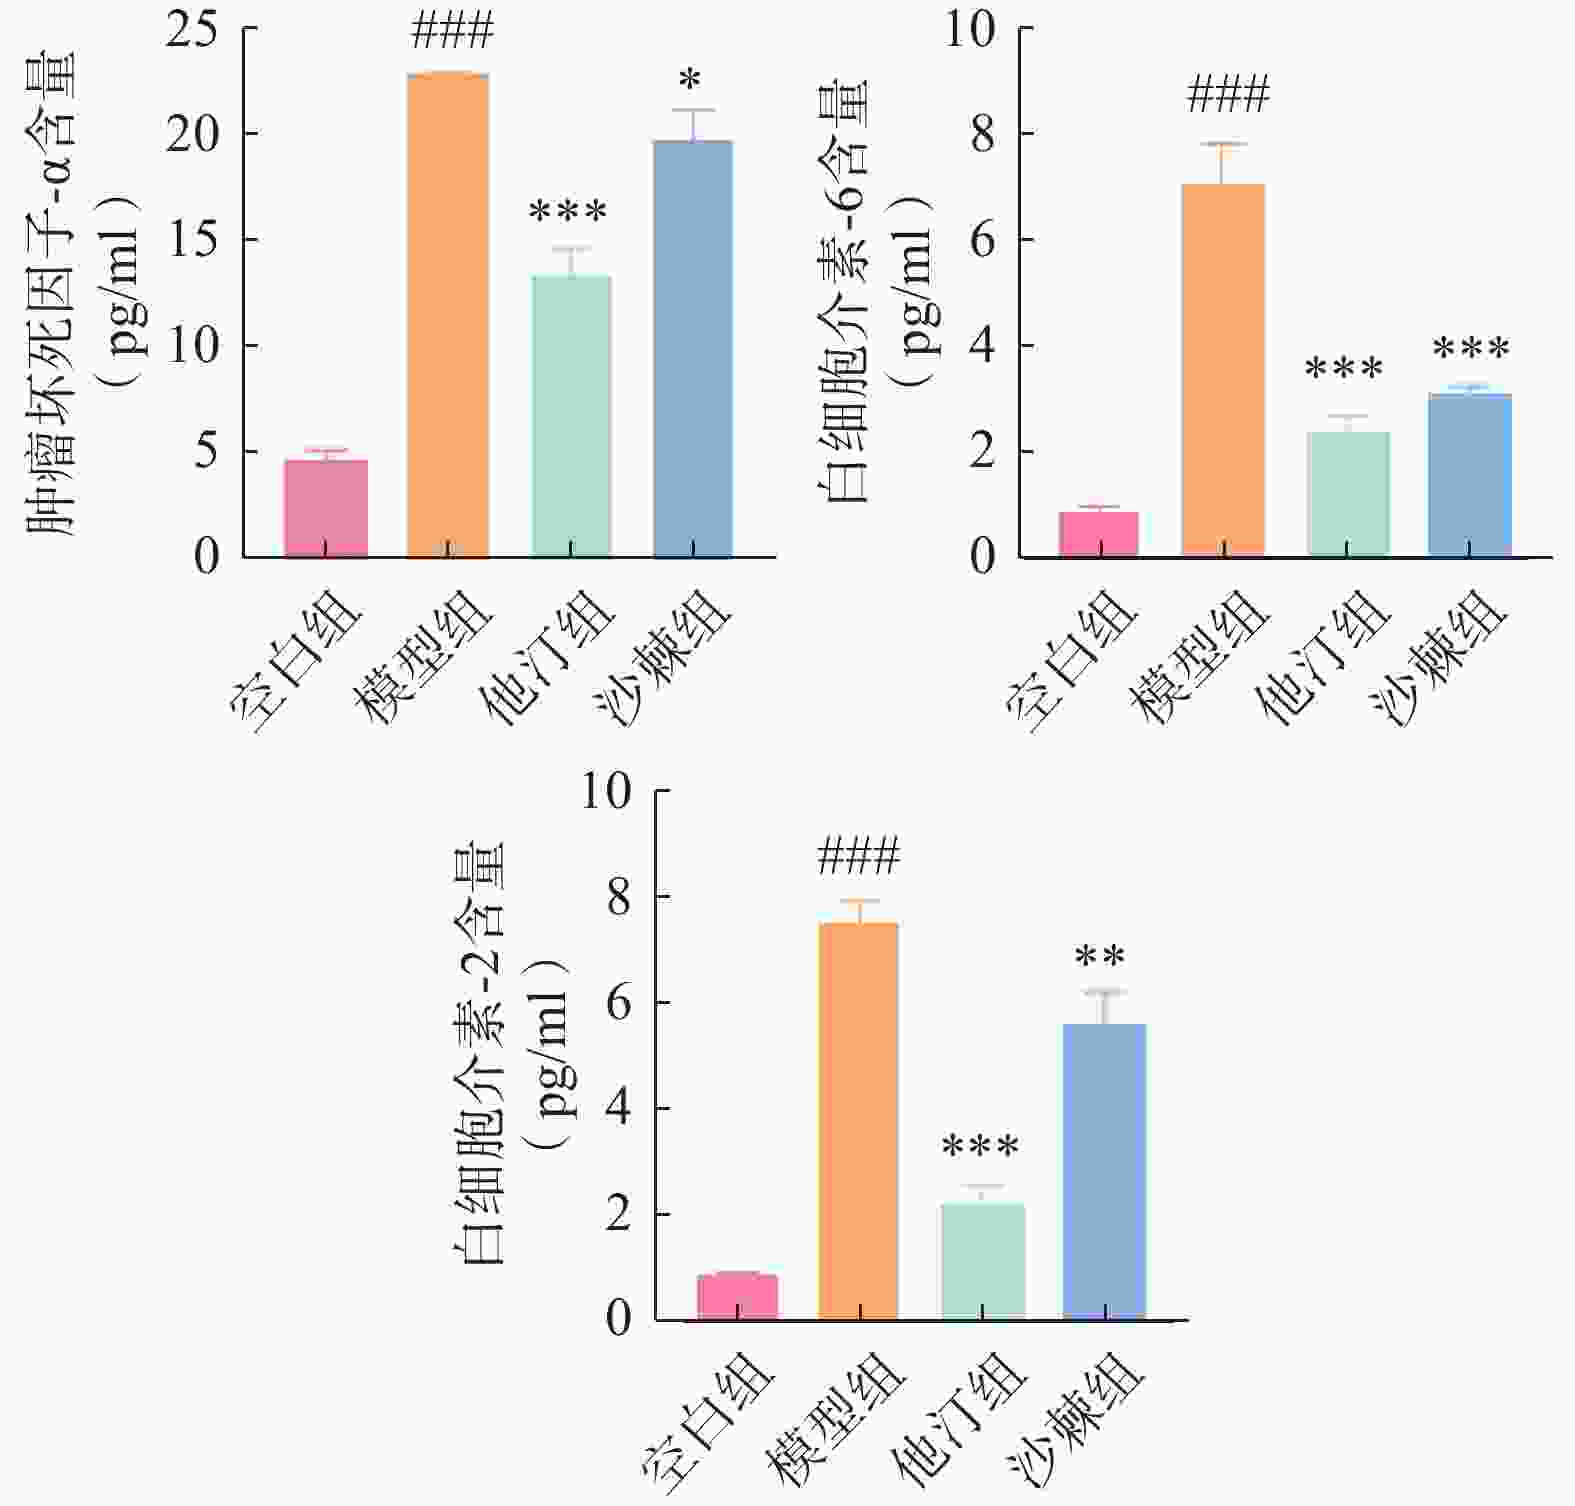
图 10 各干预措施对高脂血症小鼠血清TNF-α、IL-6和IL-2水平的影响
-
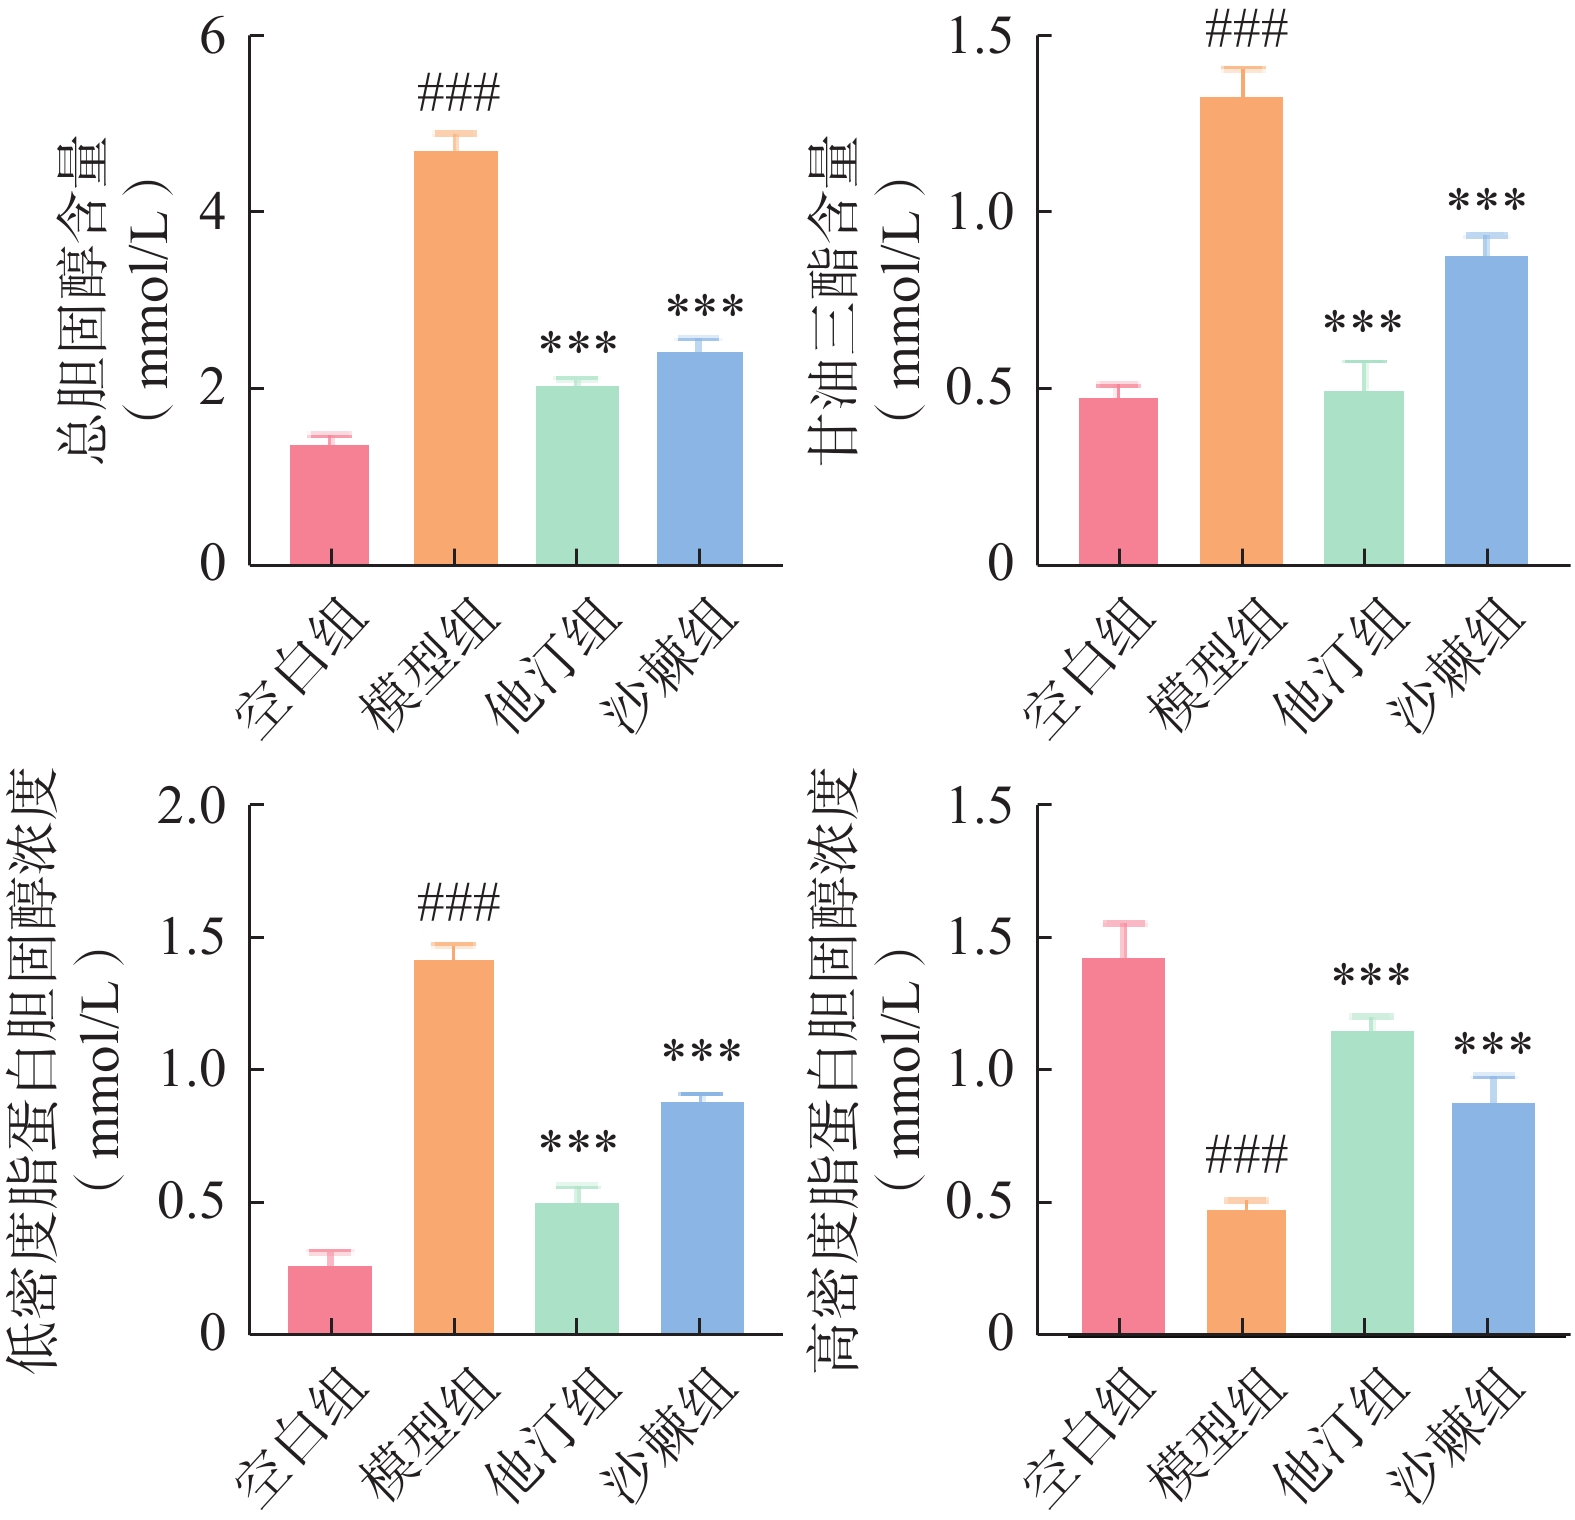
ELISA结果显示高脂血症小鼠的TC、TG、LDL、HDL含量均发生了显著变化(图11)。与空白组相比,模型组的TC、TG、LDL含量明显增加(P<0.001),HDL含量明显降低,表明造模成功;与模型组相比,他汀组与沙棘组效果类似,TC、TG、LDL、HDL含量均有显著改善(P<0.001)。
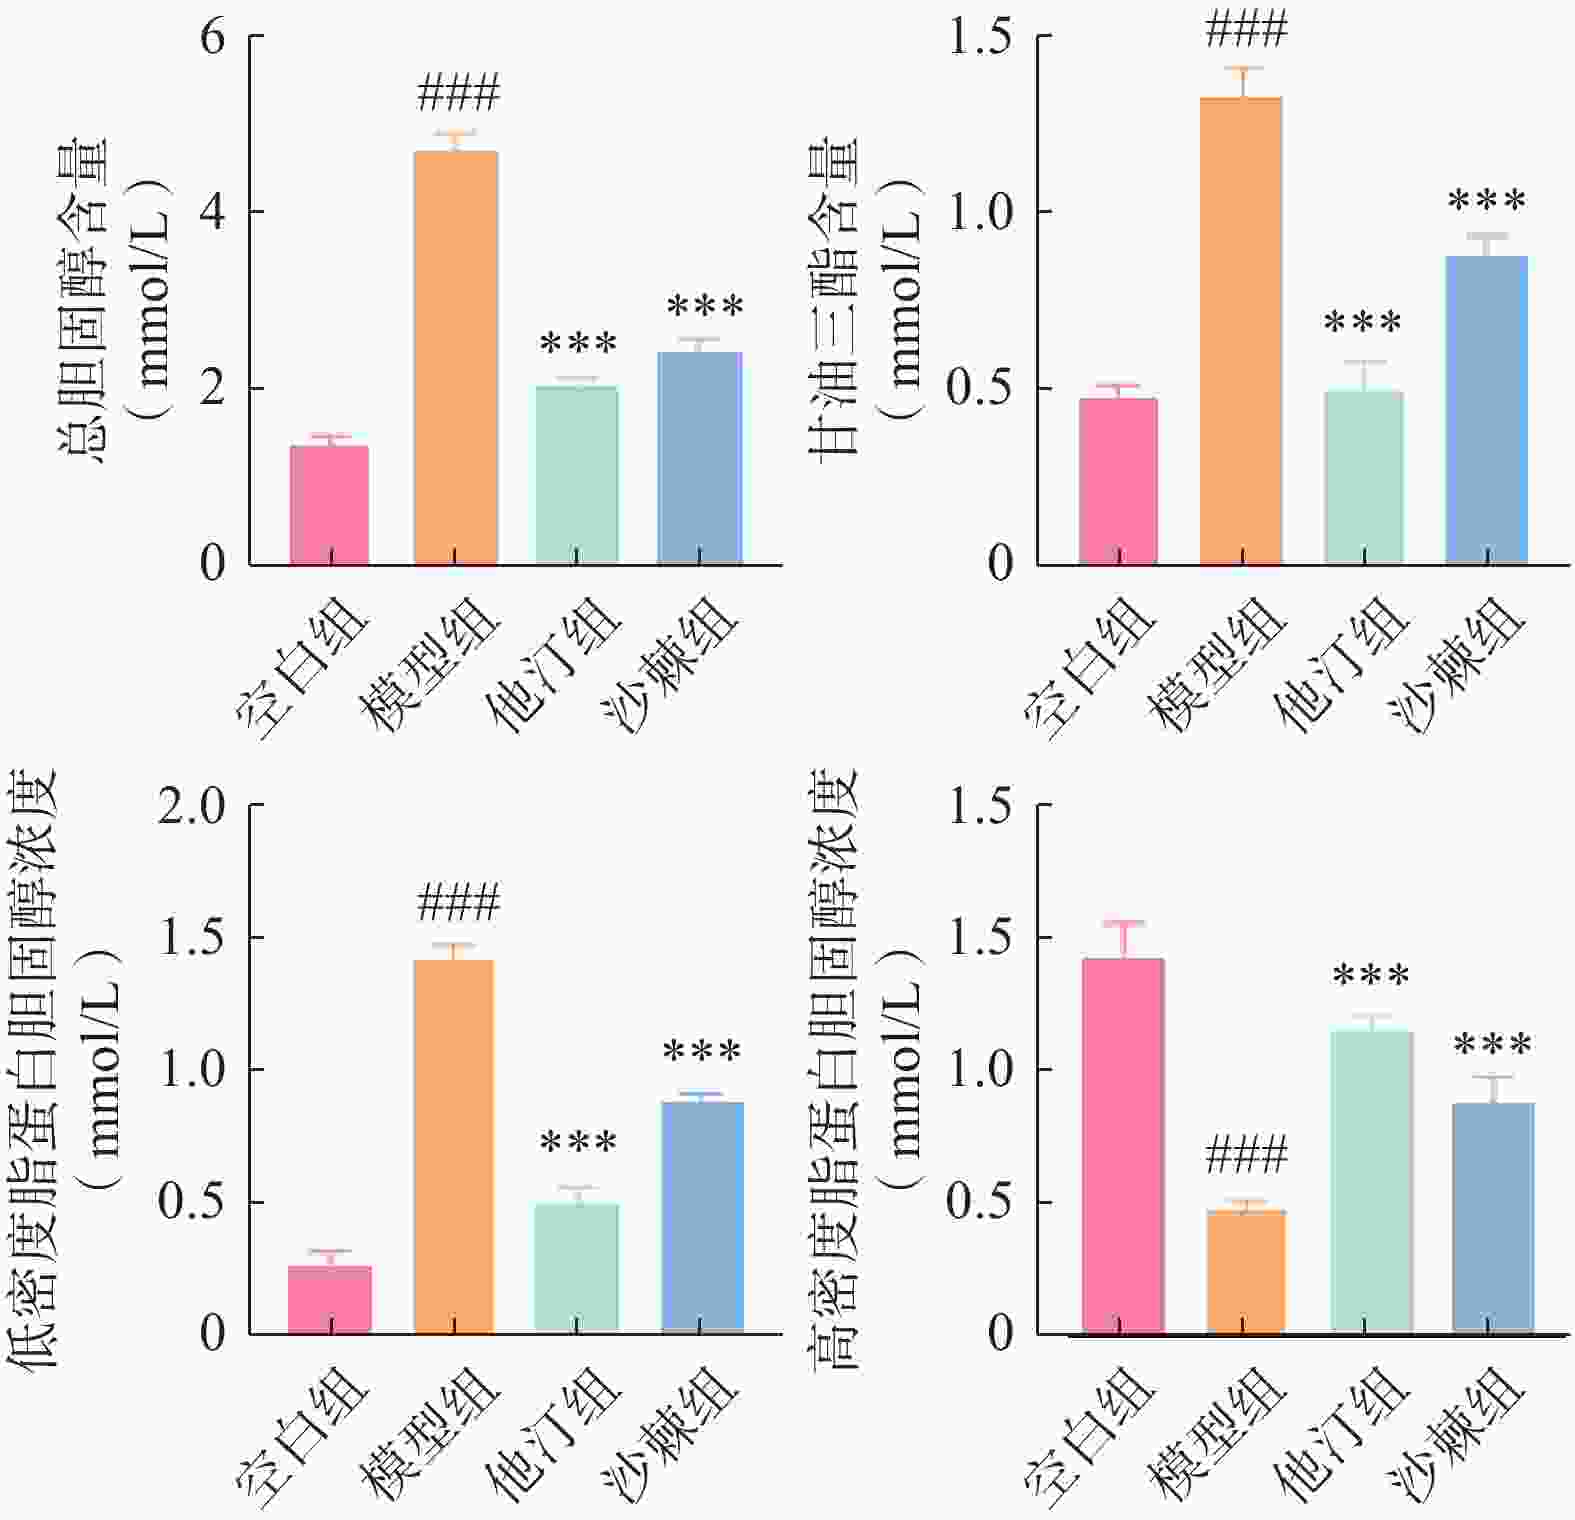
图 11 各干预措施对高脂血症小鼠血清TC、TG、LDL、HDL含量的影响
-
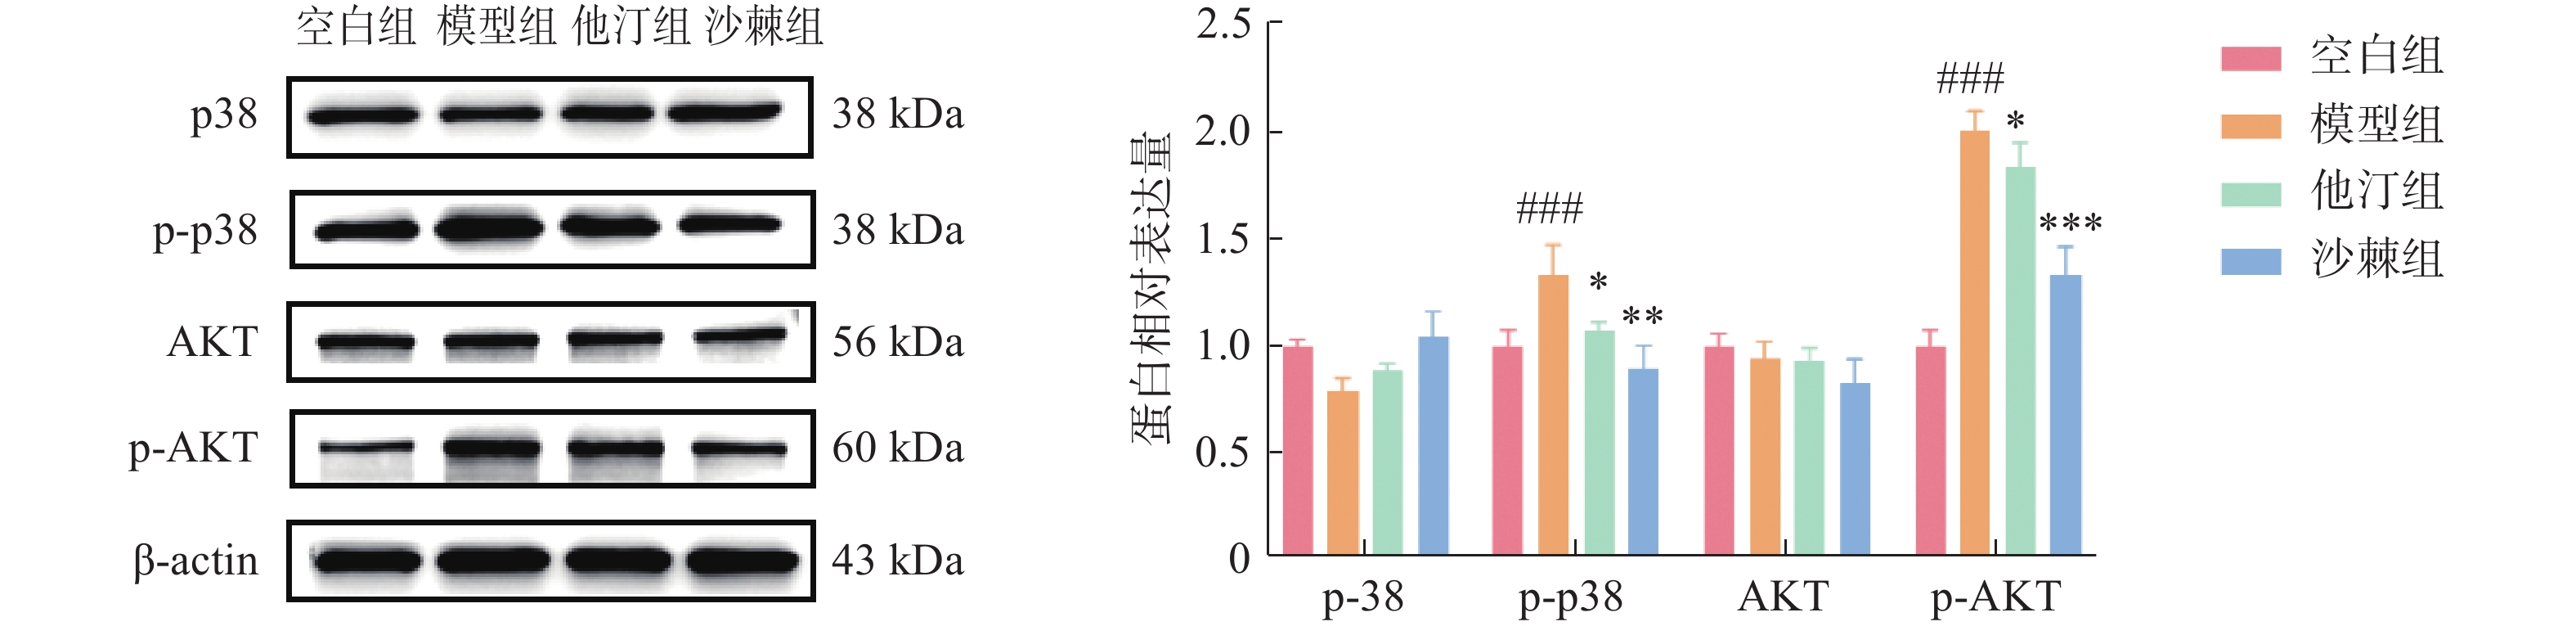
蛋白印迹法检测高脂血症小鼠肝脏组织中p38、p-p38、AKT及p-AKT的蛋白表达。对于p-p38及p-AKT磷酸化水平,与空白组相比,模型组的表达量显著升高,他汀组与沙棘组较模型组均有明显的下降。网络药理学分析显示,MAPK14(p38α)及AKT在高脂血症的进展中起重要作用,蛋白印迹法结果进一步证实沙棘能显著降低p-AKT及p-p38水平(图12)。
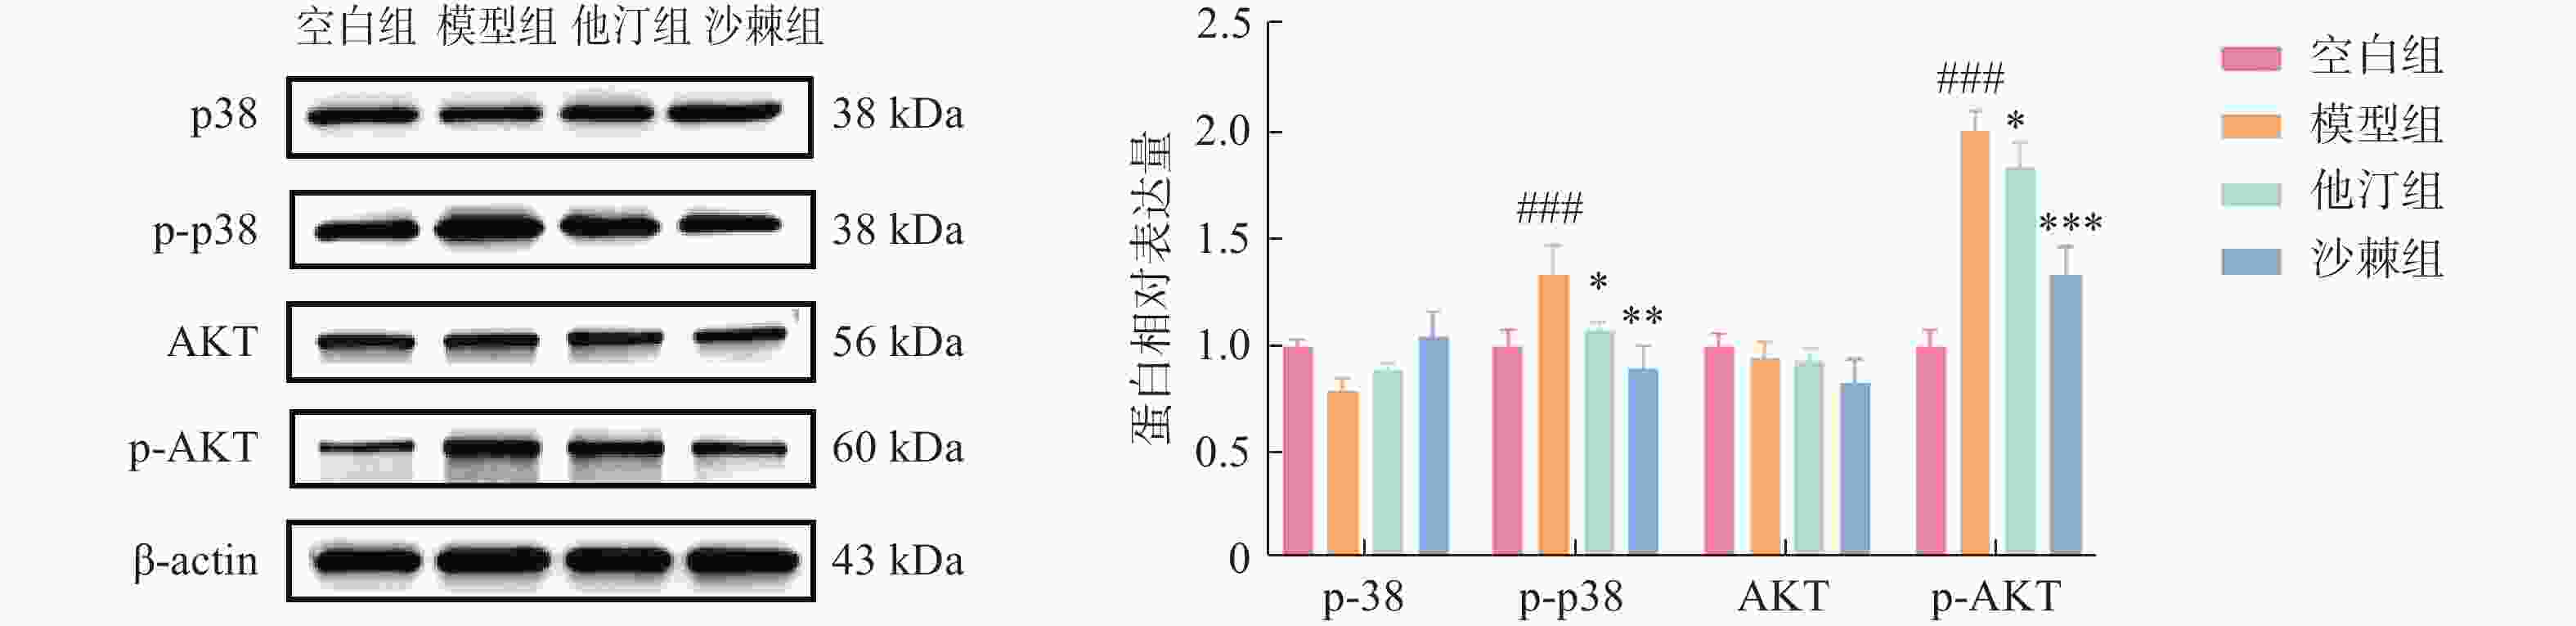
图 12 各干预措施对小鼠肝脏组织中p38、p-p38、AKT、p-AKT蛋白水平的影响
-
近年来,随着饮食结构的改变及高热量食物摄入量的增加,血脂异常成为备受关注的全球重大健康问题[20]。高脂血症病因复杂,可能与环境和遗传两大因素有关,传统的降脂药物如他汀类药物不仅会带来显著副作用,也难以应对其复杂的发病机制。沙棘为中国常用藏、蒙等少数民族习用药材,药用历史悠久,以沙棘为君药的组方被高频率使用[21-22]。本研究结合网络药理学和动物实验,探讨沙棘在高脂血症治疗中的作用机制,为支持沙棘在高脂血症中的进一步应用提供了更多证据。结果显示,沙棘治疗高脂血症具有多成分、多靶点和多通路的特征,能显著降低高脂血症导致的肝损伤、调节脂质代谢,降低炎症因子水平,体现了中药整体调节的优势。
通过成分-靶点-信号通路网络分析,在沙棘的28种具有明确作用靶点的活性成分中,槲皮素、14,15-二甲基-α-植物甾醇、山柰酚、角黄素、异鼠李素是抑制高脂血症的关键活性成分。研究表明槲皮素具有抗氧化、抗炎和降血脂等在内的广泛药理特性,一方面通过抑制ACC、FASN和SREBP-1c等脂质生成蛋白并激活PPARα和CPT1A等β-氧化通路改善脂质代谢,另一方面通过下调Nrf2和HO-1表达并上调SOD和GPX1表达,增强抗氧化能力[23-25]。此外,槲皮素还可阻断IκBα和NF-κB磷酸化实现抗炎效果,依赖IκB激酶催化的NF-κB经典信号通路通常由大量促炎因子如IL-1β及TNF-α触发,从而导致炎症反应,最终表达多种细胞因子、趋化因子、黏附分子和促炎蛋白酶[26]。本研究检测了多种炎症因子的分泌情况,与模型组相比,沙棘治疗后TNF-α、IL-6和IL-2均有显著降低。异鼠李素作为槲皮素的甲基化衍生物,与槲皮素具有类似的降脂、抗氧化和抗炎作用,且已有研究报道二者在抗氧化方面存在协同增效作用[[27-28]。山柰酚通过调控NF-κB、Nrf2及内质网应激等多条信号转导通路,对肥胖症、非酒精性脂肪性肝病及动脉粥样硬化等多种代谢性疾病治疗效果显著。角黄素是一种类胡萝卜素,能调节促氧化与抗氧化的平衡,抑制胆固醇引起的氧化应激,并影响抗氧化系统和胆固醇代谢[29]。此外,角黄素作为脂溶性类胡萝卜素,与黄酮类化合物存在双向的相互促进关系。一方面,类胡萝卜素作为脂溶性成分,可能通过参与混合胶束的形成,改善黄酮类化合物的肠道吸收;另一方面,黄酮类化合物可通过调节SR-BI和NPC1L1等转运蛋白的表达,促进类胡萝卜素的细胞摄取,进一步增强其体内药效。这种亲水性与亲脂性成分的共存,体现了中药整体调节的优势。关于14,15-二甲基-α-植物甾醇的研究较少,其用于治疗高脂血症的潜力有待探究。本研究中,沙棘提取物同时富集了这些成分,其整体降脂效果可能源于此类“多成分、多靶点”的协同机制。
基于PPI分析得出4个最关键的靶点,包括AKT1、MAPK14、IL-1β及TNF。炎症性疾病患者P-AKT显著升高,从而增加炎症因子IL-1β、TNF-α的表达[30]。IL-1β与TNF-α均是炎症反应的关键介质。在外周组织中,TNF过度产生和分泌时,可能会导致脂肪细胞和肝细胞的脂质代谢异常、胰岛素抵抗和代谢功能障碍[31]。本研究发现高脂血症小鼠肝脏p-AKT的磷酸化水平明显提升,在沙棘治疗后显著下降,而TNF-α在内的多种炎症因子呈现相同的趋势,其内在联系有待进一步确认。IL-1β可以刺激MAPK、JNK及NFκB通路,导致下游产生炎症介质以及一系列生理反应,包括增加组织血管生成,脂肪生成或脂肪细胞中脂质代谢的改变[32-34]。本研究中,沙棘治疗后p-p38水平显著下降,可能一定程度与炎症反应的减弱及脂质代谢的改善相关。p38与AKT之间存在复杂的反馈调控关系,即抑制p38可降低AKT的活性。本研究中,沙棘干预后p-p38与p-AKT均呈下降趋势,提示沙棘可能通过抑制p38活性,进而影响了AKT的磷酸化水平[35]。此外,分子对接结果显示,筛选出的核心化学成分与关键靶点结合能均≤-5 kcal/mol,具有良好的结合潜能。因此,中药的多靶点干预是对信号网络稳态的精细调整,充分体现了其优势。
GO功能富集分析显示,沙棘治疗高脂血症主要涉及转录和基因表达的正调控、细胞对脂多糖的反应及炎症反应等生物过程。KEGG通路富集分析揭示了药物主要成分与高脂血症相关的多个信号通路之间的联系,最相关通路包括脂质与动脉粥样硬化、糖尿病并发症中的AGE-RAGE信号途径及流体剪切应力与动脉粥样硬化等。动脉粥样硬化与血脂异常密切相关,其病理本质在于脂质代谢紊乱引发的系统性损伤[36-37]。本研究证明沙棘治疗后,高脂血症小鼠的TC、TG、LDL、HDL均有显著改善,这表明沙棘在代谢源头层面即可有效调控血脂水平,降低后续血管病变的初始动力。此外,炎症通路参与动脉粥样硬化病灶发展的每一个环节[38]。IL-1β及IL-6属于炎症通路的关键细胞因子,也在本研究的网络药理学分析中属于沙棘治疗高脂血症的关键靶点。本研究动物实验的结果证明了沙棘减少高脂血症小鼠多种炎症因子的分泌,因此沙棘也可降低炎症相关动脉粥样硬化的患病风险。AGE过度产生可通过与血浆脂蛋白发生反应,进而诱发血脂紊乱。此外,AGE及其与RAGE的相互作用具有致动脉粥样作用,AGE-RAGE应激的增加会提升动脉粥样引发因子的表达和产生,比如核因子κB、细胞因子及生长因子[39]。与AGE-RAGE信号途径一样,流体剪切力通路也反映了高脂血症引发的微环境改变。低流体剪切力通过上调CHOP和GRP78蛋白表达,诱导内质网应激,从而导致颈动脉斑块不稳定[40]。因此,通路分析结果不仅验证了沙棘对血脂的直接调控作用,更揭示了其在干预由高脂血症所继发的炎症应激、糖基化终产物蓄积及血流动力学紊乱中的多靶点优势,体现了沙棘通过改善上游代谢紊乱进而阻断下游心血管事件发生的整体调节特点。
综上所述,本研究通过网络药理学与体内实验相结合的策略,初步揭示了沙棘抗高脂血症的“多成分-多靶点”协同作用特征,明确了其潜在核心靶点及主要富集通路。然而,当前关键靶点的验证主要基于表达相关性分析,尚不足以建立确切的因果调控关系。后续研究将进一步借助基因干预手段,在细胞及动物水平上系统验证关键靶点的功能角色,以明确其介导沙棘药效的分子机制,为沙棘在临床高脂血症防治中的应用提供更坚实的实验依据。
Exploring the mechanism of Sea Buckthorn against hyperlipidemia based on network pharmacology and in vivo experiments
-
摘要:
目的 基于网络药理学预测和动物实验验证,探讨沙棘治疗高脂血症的有效成分、潜在靶点及分子机制。 方法 通过TCMSP数据库筛选沙棘活性成分,利用SwissTargetPrediction获取成分靶点,从OMIM、GeneCards和DisGeNET数据库收集高脂血症相关靶点,取交集获得共同靶点。构建蛋白质-蛋白质相互作用(PPI)网络,进行GO和KEGG富集分析,采用AutoDock Vina进行分子对接验证。通过高脂饮食诱导高脂血症小鼠模型,灌胃给予沙棘提取物(1.2 g/kg)或阿托伐他汀(10 mg/kg)治疗8周,检测血清总胆固醇(TC)、甘油三酯(TG)、低密度脂蛋白胆固醇(LDL-C)、高密度脂蛋白胆固醇(HDL-C) ,炎症因子肿瘤坏死因子-α(TNF-α)、白细胞介素-6(IL-6)、白细胞介素-2(IL-2)及磷酸化蛋白激酶B(p-AKT)、磷酸化丝裂原活化蛋白激酶14(p-p38) 蛋白表达水平。 结果 共筛选出28种有效成分,对应271个潜在作用靶点,其中83个为沙棘与高脂血症共同的关键靶点。网络分析显示,沙棘治疗高脂血症的核心活性成分为槲皮素、14,15-二甲基-α-植物甾醇、山柰酚、角黄素及异鼠李素等,核心靶点包括AKT1、MAPK14、IL-1β及TNF等。GO和KEGG富集分析显示,沙棘可能通过脂质和动脉粥样硬化、糖尿病并发症中的AGE-RAGE信号通路等调控脂质代谢和炎症反应。分子对接表明核心成分与靶蛋白结合能均<−5 kcal/mol。动物实验中,与模型组相比,沙棘组TC、TG、LDL显著降低(P<0.001),HDL显著升高(P<0.001),TNF-α、IL-6、IL-2显著下降(P<0.05、P<0.01或P<0.001),肝脏p-AKT和p-p38蛋白磷酸化水平显著下调(P<0.01或P<0.001)。 结论 沙棘通过槲皮素、山柰酚等多成分协同作用于AKT1、MAPK14等靶点,抑制p38和AKT磷酸化,减轻炎症反应,改善脂质代谢,从而发挥抗高脂血症作用。 Abstract:Objective To predict the active components, potential targets, and molecular mechanisms of sea buckthorn in the treatment of hyperlipidemia through network pharmacology, and to verify the findings via animal experiments. Methods Active ingredients of sea buckthorn were screened from the TCMSP database, and their corresponding targets were predicted using SwissTargetPrediction. Hyperlipidemia-related targets were retrieved from OMIM, GeneCards, and DisGeNET databases. Common targets between sea buckthorn and hyperlipidemia were identified. A protein-protein interaction (PPI) network was constructed, followed by GO functional enrichment and KEGG pathway enrichment analyses. Molecular docking was performed using AutoDock Vina. A high-fat diet-induced hyperlipidemic mouse model was established, and mice were treated with sea buckthorn extract (1.2 g/kg) or atorvastatin (10 mg/kg) by gavage for 8 weeks. Serum levels of total cholesterol (TC), triglycerides (TG), low-density lipoprotein cholesterol (LDL-C), and high-density lipoprotein cholesterol (HDL-C), as well as inflammatory cytokines tumor necrosis factor-α (TNF-α), interleukin-6 (IL-6), and interleukin-2 (IL-2), and hepatic phosphorylated protein kinase B(p-AKT) and phosphorylated mitogen-activated protein kinase 14(p-p38) protein expression levels were measured. Results A total of 28 active components were identified, corresponding to 271 potential targets, of these, 83 were common targets shared by sea buckthorn and hyperlipidemia. Network analysis revealed that the key active ingredients of sea buckthorn against hyperlipidemia included quercetin, 14,15-dimethyl-α-phytosterol, kaempferol, canthaxanthin, and isorhamnetin. Key targets comprised AKT1, MAPK14, IL-1B, and TNF. GO and KEGG enrichment analyses indicated that sea buckthorn may regulate lipid metabolism and inflammatory responses through pathways such as lipid and atherosclerosis and the AGE-RAGE signaling pathway in diabetic complications. Molecular docking showed that binding energies for all key component-target pairs were below -5 kcal/mol. In animal experiments, compared with the model group, the sea buckthorn group showed significant reductions in TC, TG, and LDL-C (P<0.001), an increase in HDL-C (P<0.001), and decreased levels of TNF-α, IL-6, and IL-2 (P<0.05, P<0.01, or P<0.001). Hepatic p-AKT and p-p38 phosphorylation levels were also significantly downregulated (P<0.01 or P<0.001). Conclusion Sea buckthorn exerts anti-hyperlipidemic effects through synergistic actions of multiple components such as quercetin and kaempferol on targets including AKT1 and MAPK14, inhibiting p38 and AKT phosphorylation, alleviating inflammatory responses, and improving lipid metabolism. -
Key words:
- Sea buckthorn /
- hyperlipidemia /
- network pharmacology /
- mechanism of action
-
图 10 各干预措施对高脂血症小鼠血清TNF-α、IL-6和IL-2水平的影响
###P<0.001,与空白组比较;*P<0.05,**P<0.01,***P<0.001与模型组比较,n=?
图 12 各干预措施对小鼠肝脏组织中p38、p-p38、AKT、p-AKT蛋白水平的影响
###P<0.001,与正常组比较; *P<0.05,**P<0.01,***P<0.001,与模型组比较
表 1 沙棘活性成分表
编号 成分 活性成分 OB(%) DL 1 MOL001004 天竺葵素 37.99 0.21 2 MOL010212 14甲基α-谷甾醇 43.49 0.78 3 MOL010227 角黄素 41.59 0.56 4 MOL010228 类胡萝卜素 40.76 0.55 5 MOL010230 ST5330591 48.08 0.84 6 MOL010234 δ-胡萝卜素 31.8 0.55 7 MOL010240 麦角甾-7-en-3-β-醇 38.76 0.83 8 MOL010241 麦角甾醇 35.41 0.71 9 MOL001979 隐甾醇 42.12 0.75 10 MOL010283 ZINC03831331 47.6 0.65 11 MOL001420 β-植物甾醇 38 0.76 12 MOL001494 亚油酸乙酯 42 0.19 13 MOL001510 22,23-二氢菜籽甾醇 37.58 0.71 14 MOL002268 大黄酸 47.07 0.28 15 MOL002588 齿孔醇 42.37 0.77 16 MOL002773 β-胡萝卜素 37.18 0.58 17 MOL000354 异鼠李素 49.6 0.31 18 MOL000358 β-谷甾醇 36.91 0.75 19 MOL000359 谷甾醇 36.91 0.75 20 MOL000422 山柰酚 41.88 0.24 21 MOL000433 叶酸 68.96 0.71 22 MOL000449 豆甾醇 43.83 0.76 23 MOL000492 (+)-儿茶素 54.83 0.24 24 MOL005100 橙皮素 47.74 0.27 25 MOL010211 14,15-二甲基-α-植物甾醇 43.14 0.78 26 MOL000073 (+)-表儿茶素 48.96 0.24 27 MOL000953 胆甾醇 37.87 0.68 28 MOL000098 槲皮素 46.43 0.28  下载: 导出CSV
-
[1] ZHAO H W, WANG Y, LI Y Q, et al. Research advances in current drugs targeting hyperlipidemia(Review)[J]. Mol Med Rep, 2025, 32(4): 1-17. doi: 10.3892/mmr.2025.13623 [2] GILES L A. Hyperlipidemia prevention and management utilizing lifestyle changes[J]. J Midwifery Womens Health, 2024, 69(3): 361-369. doi: 10.1111/jmwh.13637 [3] CHENG D Y, ZHANG M, ZHENG Y Z, et al. α-Ketoglutarate prevents hyperlipidemia-induced fatty liver mitochondrial dysfunction and oxidative stress by activating the AMPK-pgc-1α/Nrf2 pathway[J]. Redox Biol, 2024, 74: 103230. doi: 10.1016/j.redox.2024.103230 [4] LI L, GUO Z, ZHAO Y, et al. The impact of oxidative stress on abnormal lipid metabolism-mediated disease development. Arch Biochem Biophys, 2025, 766: 110348. [5] Murphy JM, Jeong K, Tran DTK, et al. Nuclear FAK in endothelium: An intrinsic inhibitor of NF-κB activation in atherosclerosis. Atherosclerosis, 2023, 379: 117189. [6] SINGH I P, AHMAD F, GORE D D, et al. Therapeutic potential of seabuckthorn: a patent review(2000-2018)[J]. Expert Opin Ther Pat, 2019, 29(9): 733-744. doi: 10.1080/13543776.2019.1648434 [7] 薛延团, 张晓凤, 张育浩, 等. 沙棘甾醇降血脂作用评价[J]. 中国食品添加剂, 2019, 30(7): 129-137. doi: 10.3969/j.issn.1006-2513.2019.07.013 [8] LV W J, HUANG J Y, LIN J, et al. Phytosterols alleviate hyperlipidemia by regulating gut microbiota and cholesterol metabolism in mice[J]. Oxid Med Cell Longev, 2023, 2023: 6409385. [9] IYANDA A, ADELEKE R, BOAKYE K, et al. Hyperlipidemia risk factors among middle-aged population in the United States[J]. J Prev Interv Community, 2025, 53(3): 489-512. doi: 10.1080/10852352.2025.2480455 [10] NEI Y, ZHANG M, HUANG Y. W. Research Progress on Natural Compounds Inhibiting HMG-CoA Reductase for Improving Cardiovascular and Cerebrovascular Diseases[J]. J. Food Saf. Qual, 2021, 12: 7333-7341. [11] CESARONE M R, HU S, BELCARO G, et al. Borderline hyperlipidemia: preventive supplementation with berberine phospholipids to prevent early atherosclerosis evolution[J]. Minerva Med, 2025, 116(4): 285-291. doi: 10.23736/s0026-4806.25.09637-5 [12] JAŚNIEWSKA A, DIOWKSZ A. Wide spectrum of active compounds in sea buckthorn(Hippophae rhamnoides)for disease prevention and food production[J]. Antioxidants, 2021, 10(8): 1279. doi: 10.3390/antiox10081279 [13] CRISTE A, URCAN A C, BUNEA A, et al. Phytochemical composition and biological activity of berries and leaves from four Romanian Sea buckthorn(Hippophae rhamnoides L. )varieties[J]. Molecules, 2020, 25(5): 1170. doi: 10.3390/molecules25051170 [14] LI J, GUO J H, YUEN M, et al. The comparative effects of ω-7 fatty acid-rich sea buckthorn oil and ω-3 fatty acid-rich DHA algal oil on improving high-fat diet-induced hyperlipidemia[J]. Food Funct, 2025, 16(4): 1241-1253. doi: 10.1039/D4FO04961F [15] KOPČEKOVÁ J, MRÁZOVÁ J, FATRCOVÁ-ŠRAMKOVÁ K, et al. Benefits of sea buckthorn juice consumption in women of productive age with hypercholesterolemia[J]. Rocz Panstw Zakl Hig, 2023, 74(2): 187-193. doi: 10.32394/rpzh.2023.0258 [16] ZHOU F F, ZHANG J, ZHAO A, et al. Effects of sea buckthorn puree on risk factors of cardiovascular disease in hypercholesterolemia population: a double-blind, randomized, placebo-controlled trial[J]. Anim Biotechnol, 2022, 33(5): 955-963. doi: 10.1080/10495398.2020.1853139 [17] SHAIMAA S ABDULLAH*, AHMED R ABU RAGHIF. Effect of Apremilast in Experimentally Induced Hyperlipidemic Mice[J]. J Carcinog, 2023, 22(1): 20-27. [18] NAIR A, JACOB S. A simple practice guide for dose conversion between animals and human[J]. J Basic Clin Pharma, 2016, 7(2): 27. doi: 10.4103/0976-0105.177703 [19] Kirkley A. Identifying hubs in directed networks. Phys Rev E. 2024 Mar;109(3-1): 034310. [20] ZHI D D, HE X Y, YANG L F, et al. Royal jelly acid alleviates diet-induced hyperlipidemia through regulation of oxidative stress and tryptophan metabolism[J]. Eur J Pharmacol, 2025, 998: 177500. doi: 10.1016/j.ejphar.2025.177500 [21] 施春桥, 林娅宁, 俞佳, 等. 基于CiteSpace知识图谱的沙棘研究热点与趋势可视化分析[J]. 中药与临床, 2025, 16(6): 51-57. [22] 王庆芬, 陈根光, 黄丽珊, 等. 基于网络药理学探讨黄芩治疗痤疮活性成分及作用机制[J]. 解放军药学学报, 2024, 37(1): 19-24. doi: 10.3969/j.issn.1008-9926.2024.01.006 [23] KATSAROS I, SOTIROPOULOU M, VAILAS M, et al. Quercetin’s potential in MASLD: investigating the role of autophagy and key molecular pathways in liver steatosis and inflammation[J]. Nutrients, 2024, 16(22): 3789. doi: 10.3390/nu16223789 [24] CHIANG M C, TSAI T Y, WANG C J. The potential benefits of quercetin for brain health: a review of anti-inflammatory and neuroprotective mechanisms[J]. Int J Mol Sci, 2023, 24(7): 6328. doi: 10.3390/ijms24076328 [25] JIANG L, YI R, CHEN H, et al. Quercetin alleviates metabolic-associated fatty liver disease by tuning hepatic lipid metabolism, oxidative stress and inflammation[J]. Anim Biotechnol, 2025, 36: 2442351. doi: 10.1080/10495398.2024.2442351 [26] MAJDALAWIEH A, RO H S. Regulation of IkappaBalpha function and NF-kappaB signaling: AEBP1 is a novel proinflammatory mediator in macrophages[J]. Mediators Inflamm, 2010, 2010: 823821. [27] GUNGOR H, EKICI M, ATES M B. Lipid-lowering, anti-inflammatory, and hepatoprotective effects of isorhamnetin on acetaminophen-induced hepatotoxicity in mice[J]. Drug Chem Toxicol, 2023, 46(3): 566-574. doi: 10.1080/01480545.2022.2069256 [28] NAKSURIYA O, DAOWTAK K, TIMA S, et al. Hydrolyzed flavonoids from Cyrtosperma johnstonii with superior antioxidant, antiproliferative, and anti-inflammatory potential for cancer prevention[J]. Molecules, 2022, 27(10): 3226. doi: 10.3390/molecules27103226 [29] GAUR V, BERA S. Microbial canthaxanthin: an orange-red keto carotenoidwith potential pharmaceutical applications[J]. BioTechnologia, 2023, 104(3): 315-328. doi: 10.5114/bta.2023.130733 [30] LI S, WANG Y, ZHAO C, et al. Akt inhibitor deguelin aggravates inflammation and fibrosis in myocarditis[J]. Iran J Basic Med Sci, 2019, 22(11): 1275-1282. [31] LO C H, ZENG J L. TNF as a mediator of metabolic inflammation and body-brain interaction in obesity-driven neuroinflammation and neurodegeneration[J]. Ageing Res Rev, 2025, 112: 102891. doi: 10.1016/j.arr.2025.102891 [32] LOPEZ-CASTEJON G, BROUGH D. Understanding the mechanism of IL-1β secretion[J]. Cytokine Growth Factor Rev, 2011, 22(4): 189-195. doi: 10.1016/j.cytogfr.2011.10.001 [33] HARDAWAY A L, PODGORSKI I. Il-1β, rage and Fabp4: targeting the dynamic trio in metabolic inflammation and related pathologies[J]. Future Med Chem, 2013, 5(10): 1089-1108. doi: 10.4155/fmc.13.90 [34] YANG C N, FU J X, ZHENG F S, et al. Aconitine promotes ROS-activated P38/MAPK/Nrf2 pathway to inhibit autophagy and promote myocardial injury[J]. J Cardiothorac Surg, 2024, 19(1): 665. doi: 10.1186/s13019-024-03149-0 [35] KINNUNEN P C, LUKER G D, LUKER K E, et al. Computational modeling implicates protein scaffolding in p38 regulation of Akt[J]. J Theor Biol, 2022, 555: 111294. doi: 10.1016/j.jtbi.2022.111294 [36] AJOOLABADY A, PRATICO D, LIN L, et al. Inflammation in atherosclerosis: pathophysiology and mechanisms[J]. Cell Death Dis, 2024, 15(11): 817. doi: 10.1038/s41419-024-07166-8 [37] WAZIR M, OLANREWAJU O A, YAHYA M, et al. Lipid disorders and cardiovascular risk: a comprehensive analysis of current perspectives[J]. Cureus, 2023, 15(12): e51395. doi: 10.7759/cureus.51395 [38] LIBBY P, SOEHNLEIN O. Inflammation in atherosclerosis: Lessons and therapeutic implications[J]. Immunity, 2025, 58(10): 2383-2401. doi: 10.1016/j.immuni.2025.09.012 [39] PRASAD K, KHAN A S, BHANUMATHY K K. Does AGE–RAGE stress play a role in the development of coronary artery disease in obesity?[J]. Int J Angiol, 2022, 31(1): 1-9. doi: 10.1055/s-0042-1742587 [40] CHEN D, WANG L D, JIANG T, et al. Flow shear force destabilizes carotid plaques by affecting CHOP and GRP78 proteins[J]. J Stroke Cerebrovasc Dis, 2024, 33(9): 107851. doi: 10.1016/j.jstrokecerebrovasdis.2024.107851 -

 点击查看大图
图(12) / 表(1)
计量
- 文章访问数: 13
- HTML全文浏览量: 6
- PDF下载量: 0
- 被引次数: 0
